




作为将研究型实验进行改革,使之适应于本科教学的一项有益尝试,本文将介绍一个利用DNA分析(测序)仪来分析聚合酶结构对其复制/修复DNA功能关系的化学生物学实验。通过本实验,学生将把蛋白质结构与功能的理论知识运用到实际操作中,比较复制型DNA聚合酶(T4 DNA聚合酶)与跨损伤DNA聚合酶(Polκ)复制/修复损伤DNA的不同。同时,学生将首次接触到作为广泛应用于人类基因组学、个体化医疗等研究的DNA测序仪,取代传统的聚丙烯酰胺平板电泳分析酶活性的技术,以及这项技术在分析生物活性应用中的优势与不足。
1 背景知识
1.1 DNA损伤
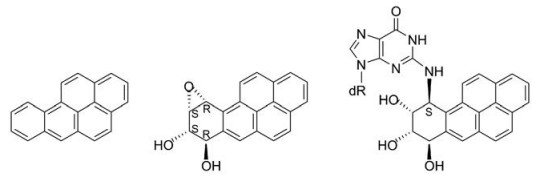
1953年,詹姆斯·沃森(James Watson)和弗朗西斯·克里克(Francis Crick)解析出著名的脱氧核糖核酸(DNA)分子双螺旋结构。从那时起,DNA分子有遗传属性并在细胞分裂时能够自我复制,从而保持了物种的延续成为大家的共识。但是DNA一直受到多种外源(如紫外线照射和环境污染物等)及内源(如活性自由基)物质的攻击,同时DNA的每次复制进程都伴随着随机的错误。这些伤害导致DNA发生氧化、烷基化,形成多种DNA加合物以及造成DNA单链或者双链的断裂[3]。苯并芘benzo[a] pyrene (BP)是一类多环芳烃类化合物,BP被认为是在吸烟致癌患者中,诱导p53突变的根源(图1)。苯并芘二醇环氧化物benzopyrene diol epoxide (BPDE)是BP在人体内的所有代谢产物中,最具有变异性与致癌性的一个,它倾向与DNA中鸟嘌呤的环外氨基发生共价化学反应,形成的苯并芘-鸟嘌呤(BP-dG) DNA加合物会阻滞DNA复制(图1),严重时诱发DNA双链断裂以及细胞死亡[4]。但正是DNA修复机制对基因组不断地进行监督并及时校正DNA损伤,从而使得机体能够正常地运行。
图1
1.2 DNA修复
细胞内的DNA修复系统包括碱基切除修复(BER)、DNA错配修复(MMR)、核苷酸切除修复(NER)以及DNA损伤耐受机制之一的跨损伤DNA合成机制(TLS)等,它们是保障基因组正常运行的关键[5]。跨损伤DNA合成是利用特异的低保真度的TLS聚合酶帮助细胞在DNA损伤存在下继续复制DNA,从而避免受阻的复制叉被破坏进而导致产生致命的双链断裂。大量体外、体内研究发现,不同的TLS聚合酶能复制不同的DNA损伤,整合进入正确或错误的碱基,因此TLS被分为两种类型:无错旁路和易错旁路。目前在哺乳动物细胞中已发现大约12种不同的TLS聚合酶,它们在体内基因组突变和获得性肿瘤耐药性中都起着非常关键的作用。
1.3 TLS聚合酶
DNA聚合酶是生物体细胞高保真复制DNA的关键酶,它沿着DNA模板以5′-3′的方向进行合成。它们的结构域符合右手形状,各个结构域分别被命名为拇指域、食指域、手掌域以及具有纠错功能的核酸外切酶(3′-5′外切酶活性,exo)结构域(图2A)。DNA聚合酶可分为复制型DNA聚合酶以及TLS聚合酶。复制型DNA聚合酶是一类高保真性聚合酶,它们与底物之间严格而又紧密的结合方式保证了DNA复制能够快速、准确、持续地进行(图2B)。但是由于损伤DNA无法进入活性中心,高保真聚合酶无法进行复制,此时,TLS聚合酶就会行使复制功能[6]。它们的催化活性中心具有更小的手指域、拇指域、手掌域,且不具有exo结构域。因此,相对开放的活性区域、小指域-DNA-拇指域的“三明治”方式(图2C、2D)以及较低的几何学要求,使得TLS聚合酶能够耐受DNA损伤并行使跨损伤合成DNA的功能[7]。
图2
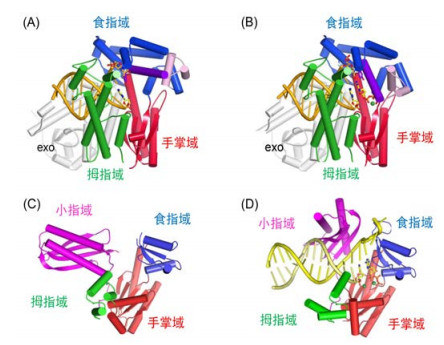
图2
DNA复制酶和TLS聚合酶结构示意图[6]
白色为具有外切酶活性的结构域(exo),紫色代表O-helix。(A)和(B)分别代表DNA复制酶未结合dNTP (A)及结合dNTP (B)的状态。只有dNTP与反应底物在几何学上完全正确的条件下,DNA复制酶才能发挥功能。(C)和(D)分别代表TLS聚合酶Dpo4未结合DNA (C)和结合DNA (D)状态下的结构。TLS聚合酶所具有的更加开放的催化中心能够容纳DNA加合物的存在,从而继续行使DNA复制的功能。电子版为彩图
本实验课程从蛋白质结构入手,应用DNA分析仪分析聚合酶结构与复制DNA功能的相互关系[8]。通过本实验,学生将会了解到作为大气主要环境污染物之一的苯并芘与DNA所形成的DNA损伤对基因组不稳定性的影响以及跨损伤DNA聚合酶Polκ是如何帮助细胞应对胁迫的分子耐受机制[9−11]。作为化学生物学综合实验课程的备选课程,本实验涉及合成化学、生物化学、分析化学等各方面,着重锻炼学生在重组蛋白的表达及纯化、DNA聚合酶反应、凝胶电泳等方面的实际操作技能;同时,培养学生发现问题、分析并解决问题的能力。
2 实验准备
本实验所涉及的内容主要分为三部分,即损伤DNA的合成、聚合酶的表达与纯化以及聚合酶的活性表征。实验分为实验准备和实验步骤两个部分。其中,实验准备由教师及1名学生助教来完成,并积极欢迎有兴趣的学生加入。在实验准备阶段,主要完成损伤DNA的合成和Polκ蛋白的表达。准备实验的讲义内容,视频会提前一周发给学生,并通过实验课前小测试(quiz)了解学生的预习情况。
2.1 试剂
T4 DNA聚合酶、连接酶、激酶购自于上海碧云天生物技术有限公司,5′端6-FAM荧光标记22-nt引物5′-CATAGGGCGAATTCGGATGGT-3′、spin-out小型离心式脱盐柱购于上海生工生物,脱氧核糖核苷三磷酸(dNTPs)、硼酸、乙二胺四乙酸(EDTA)、三羟甲基氨基甲烷盐酸盐(Tris-HCl)、氯化钠、牛血清白蛋白(BSA)购于北京天根生化科技有限公司,二硫苏糖醇(DTT)、氯化镁、苯甲基磺酰氟(PMSF)、LB培养基、异丙基-β-D-硫代半乳糖苷(IPTG)、Ni-NTA琼脂糖珠、甘油、咪唑、甲酰胺购于北京索莱宝科技有限公司。
2.2 仪器
DNA分析仪(美国应用生物系统公司),凝胶电泳仪(伯乐生命医学有限公司),超声破碎仪,金属浴,NanoDrop 2000超微量分光光度计(赛默飞世尔科技有限公司)。
2.3 制备带有特定损伤位点的DNA加合物
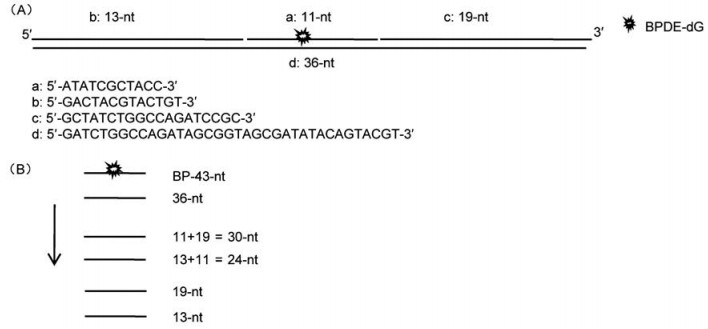
室温下,首先将带有BP-dG损伤的寡聚核苷酸链a及正常的寡聚核苷酸片段b、c、d按照物质的量比1: 1.5: 1.5: 2比例混合,90 ℃加热3分钟后退火至室温。接着,利用T4连接酶连接各个寡聚核苷酸链片段,室温下反应10分钟后,Spin-out离心式脱盐柱除去反应中盐离子。脱盐后的样品置于90 ℃加热3分钟后,加入20%变性聚丙烯酰胺凝胶电泳(dPAGE)胶的泳道进行分离,得到带有特定损伤位点的单链DNA(图3),Nanodrop 2000测定浓度。最后,将5′端6-FAM荧光标记22-nt引物与带有特定损伤位点的oligo模板序列按照物质的量比1: 1.2的比例混合,90 ℃加热3分钟后退火至室温,从而制备得到引物/模板的反应底物。
图3
思考:是否可以用寡聚核苷酸片段的质量比来进行DNA的合成制备?
注意:配制变性聚丙烯酰胺凝胶电泳时,须用到微量刺激性液体四甲基乙二胺,一定要佩戴口罩、护目镜,并在通风橱内操作。
2.4 TLS聚合酶Polκ蛋白的表达
(1)取转化有pET21a-Polκ (1-852)全长质粒的大肠杆菌BL21 (DE3)单克隆置于15 mL灭菌离心管中(离心管中须先加入3 mL LB培养基,培养基中含有浓度为50 mg·L−1的氨苄青霉素),将离心管置于摇床中,37 ℃、220 r·min−1过夜培养。
(2)将过夜培养的菌液按照1: 100的比例加入到含50 mg·L−1氨苄青霉素的LB培养基中,37 ℃、220 r·min−1扩大培养。待菌液的光密度(optical density,OD600)达到0.4-0.6时,加入0.25 mmol·L−1 IPTG,16 ℃下诱导蛋白表达16小时。
(3)离心收集过夜培养的菌液(4 ℃,4000 r·min−1,10 min),弃上层清液后用10 mL裂解缓冲液(10 mmol·L−1 Tris-HCl,300 mmol·L−1 NaCl,1 mmol·L−1 EDTA,1 mmol·L−1 PMSF,pH 7.4)将所得菌体重悬,使用超声破碎仪裂解菌体。使用高速冷冻离心机(13000 r·min−1,10 min,4 ℃)收集上层清液。
思考:哺乳动物细胞中已发现大约12种不同的TLS聚合酶,为何选择Polκ作为研究复制BP-dG加合物的聚合酶?
注意:a)加入IPTG诱导蛋白表达时,需要待菌液温度由37 ℃降至室温后再进行,以利于蛋白的表达;b)裂解缓冲液须现用现配,蛋白酶抑制剂PMSF须最后加入。
3 实验步骤
本实验以两名学生为一组共同完成,实验室可容纳8组学生同时进行实验。实验在总共8学时的化学生物学实验课上分两周完成。第一周主要完成步骤3.1实验试剂的配制以及3.2蛋白的纯化,第二周将完成步骤3.3蛋白活性反应的制备以及3.4数据表征分析。具体操作如下。
3.1 缓冲溶液的配制
(1)蛋白结合缓冲液:20 mmol·L−1 Tris-HCl、500 mmol·L−1 NaCl、25 mmol·L−1咪唑,1 mmol·L−1 DTT,pH 7.5,4 ℃。
(2)蛋白洗脱缓冲液:20 mmol·L−1 Tris-HCl、500 mmol·L−1 NaCl、250 mmol·L−1咪唑,1 mmol·L−1 DTT,pH 7.5,4 ℃。
注意:a)为了更好地利用课堂时间,教师会在课前将Tris-HCl、NaCl、咪唑配制成浓度为1 mol·L−1的储液,再由学生按照比例进行相应的稀释。由于Polκ蛋白在pH 7.0-8.0区间都很稳定,因此我们要求pH只要调节在7.0-8.0之间即可进行下一步蛋白纯化的操作。b)调节pH需要用到少量浓盐酸,浓盐酸腐蚀性强且易挥发,使用时务必在通风橱内由教师或助教指导学生完成。对于终体积为10 mL的缓冲溶液体系来说,大约只需要加入2滴浓盐酸即可将洗脱缓冲液的pH调节至8.0以下。
3.2 TLS聚合酶Polκ蛋白的纯化
将步骤2.4中准备好的Polκ蛋白上层清液用0.22 µm滤膜过滤,去除细胞碎片等不溶物,并与Ni-NTA琼脂糖珠在蛋白结合缓冲液中作用30分钟。纯化时,先用2 mL蛋白结合缓冲液清洗杂蛋白,再用1 mL蛋白洗脱缓冲液洗脱蛋白2次。蛋白纯化完毕后,利用8%预制SDS-PAGE胶检测Polκ蛋白纯度(图4),并置于-30 ℃冰箱中保存。
图4
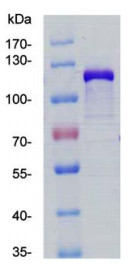
已开展实验表明,由于部分学生处理蛋白样品时不注意在冰上进行操作,导致蛋白降解,洗脱后的目的条带不清晰。此时,可以将与Polκ孵育的Ni-NTA琼脂糖珠取出并直接用于Polκ蛋白纯度检测。由于未洗脱下来的蛋白仍具有活性结构,因而可继续进行下面的实验内容。本操作更多的是给学生在概念上树立实验对蛋白纯度的要求,并对样品不纯可能对后续实验结果的影响展开讨论。另外,由于本实验有8组学生同时展开,所以8个样品和1个蛋白标准品可同时跑在一块10孔的预制SDS-PAGE胶上,提高效率。
注意:取出凝胶梳子时速度不宜过快,防止电泳槽中的缓冲液溅出。
3.3 蛋白活性反应的制备
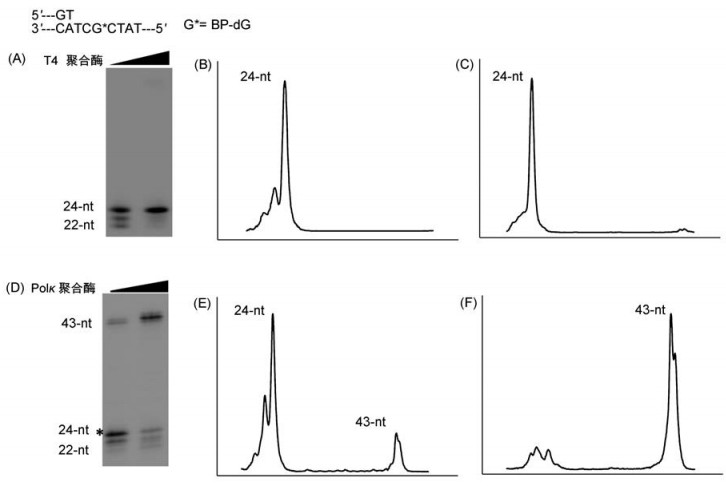
在含有25 mmol·L−1 Tris-HCl (pH 7.5)、0.1 g·L−1 BSA、1 mmol·L−1 DTT、5 mmol·L−1 MgCl2和2.5% (质量/体积)甘油的1.5 mL EP管中,加入从步骤2.3中得到的带有6FAM荧光标记的100 nmol·L−1反应底物,不同浓度(0、2、5 nmol·L−1)的DNA聚合酶(T4、Polκ)以及1 mmol·L−1 dNTPs,37 ℃反应5分钟。聚合反应以5 μL含有20 mmol·L−1 EDTA-2Na的95% (体积分数)甲酰胺溶液终止。将样品置于90 ℃金属浴加热3分钟后待恢复至室温。接下来,学生将所制备的含有不同聚合酶浓度的样品分为两部分,其中一半体积的样品通过预制的20% dPAGE凝胶电泳测定Polκ活性(图5A、6A、6D),而另一半样品则上样到DNA分析仪的96孔板中,通过全自动扫描的方式得到实验结果(图5B、6B、6C、6E、6F)。
图5
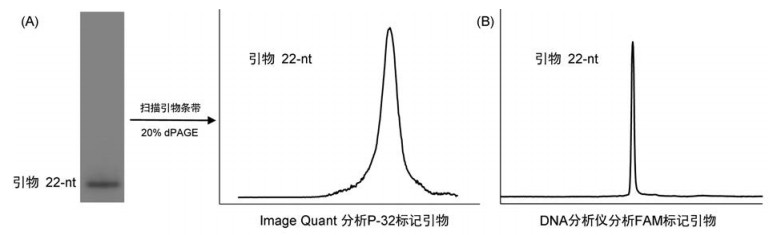
图6
实验中,除了Polκ之外的其他试剂,如Tris-HCl、BSA、MgCl2等都已配制为浓度适合的储液,再由学生按照浓度要求进行相应的稀释。
注意:a)作为二价金属离子的螯合剂,EDTA-2Na需要首先用NaOH调节到pH至8.0时才可完全溶解;b)甲酰胺对皮肤及呼吸道有轻微刺激性,需要在通风橱内进行操作;c)规范使用金属浴,防止加热孵育样品致EP管意外开盖。
3.4 数据分析和讨论
在得到聚合酶复制DNA损伤的数据后,指导学生通过DNA分析仪软件Peak Scanner进行数据分析。软件及具体步骤可在ThermoFisher上免费下载(http://resource.thermofisher.com),并在课堂上作为补充材料发给每组学生。学生将扫描图谱与dPAGE上分离产物片段结果进行比对和讨论。对于复制型DNA聚合酶,由于其合成DNA的功能被BP-dG DNA损伤所抑制(图6A-6C),因此聚合酶只能将引物22-nt延伸到24-nt (图6A-6C),而被位于25-nt位点的BP-dG(*)完全阻滞,从而不能越过DNA损伤继续DNA合成。而当反应体系中加入了TLS聚合酶Polκ后(图6D-6F),随着聚合酶浓度的增加,伴随着更多的完全延伸产物形成,引物22-nt含量逐渐减少,表明TLS聚合酶能够越过损伤复制DNA,并能达到完全延伸。
思考:反应时间、聚合酶纯度以及浓度对结果的影响分别是什么?
报告:每组提交一份实验报告,主要内容有预习报告,室温、各种缓冲液成分的用量、聚合酶的浓度、反应终体积、上样体积等实验记录,实验结论与分析。
4 结语
作为生物大分子之一的蛋白质,它的结构是其行使多样生理功能的基础。作为清华大学实验教学改革项目的尝试,笔者探索将研究型实验加以开发,通过DNA分析仪比较聚合酶结构对其复制DNA功能的影响,并将实验结果与传统的凝胶电泳方法作对照,从而实现科研成果与实验教学的有机结合。本实验的授课对象以大三、大四基科班学生为主体。考虑到他们的知识水平、操作能力以及实验课的课时安排,我们将实验分为实验准备和实验步骤两个部分。实验过程中所出现的主要问题集中在DNA聚合酶的纯化步骤。部分学生未能在蛋白电泳上看到清晰的目标蛋白条带。但是,本实验对于后续蛋白功能的分析,并不仅仅基于蛋白纯度本身。更重要的是学生可以了解如何通过合理利用已有实验条件,继续进行下游实验分析,并对实验过程中所观察到的现象及对后续实验结果的影响展开讨论。这种方式会积极提升学生在分析问题、解决问题方面的能力。另一方面,本实验作为一扇窗户,可以帮助学生了解DNA损伤的形成机制、损伤对基因组不稳定性的影响以及细胞应对损伤的修复及分子耐受机制,从而拓宽他们在生物与化学交叉领域的知识积累,培养他们的探索精神。
参考文献


