


1 引言
21世纪人类基因组测序完成标志着我们正式进入“后基因组”时代。然而随着蛋白质翻译后修饰的深入研究,人们发现蛋白质的复杂结构与精细调控除了受基因本身序列信息的影响外,还与其上的各类翻译后修饰相关。故而表观遗传学应运而生,并逐渐成为生命科学的重要研究方向之一。以赖氨酸甲基化为例,其具有化学结构的多样性,分别为单甲基化、双甲基化及三甲基化。赖氨酸甲基化作为最为重要的修饰方式之一广泛存在于核蛋白与胞质蛋白中,其主要作用可以分为两方面。一方面,赖氨酸甲基化作为表观遗传学的标志,通过参与染色质结构与功能调控进而影响了DNA的复制、转录与修复过程;另一方面,核蛋白和胞质蛋白的赖氨酸甲基化修饰往往影响的是蛋白翻译和代谢过程[1]。虽然这些翻译后修饰在细胞内大量存在,但目前具体的调控与信号传递等问题还并不清楚,也就成为表观遗传学的重要问题之一[2]。
赖氨酸作为构成蛋白质唯一一个侧链含有ε-氨基的氨基酸,具备伯胺的一系列结构特点与反应性能,故而是生物体内存在翻译后修饰种类最多的一种氨基酸。除了前文提到的甲基化,目前已经发现的修饰模式主要还包括酰基化。近年来,一系列新的酰基化修饰被逐渐发现,这些新型翻译后修饰的发现主要归功于基于串级质谱的蛋白质组学的发展[3]。
然而,各类新型蛋白质表达后修饰模式的发现及其在生物体内重要的调控作用作为化学生物学前沿知识,在国内高校的化学系或生物系本科教育中鲜有涉及。本文将从有机化学的角度出发,首先分析各类新型赖氨酸酰基化的结构特性,进而介绍其各自的发现过程与特点。最后将简要介绍目前赖氨酸翻译后修饰的生命科学研究进展,以期对相关专业的教学与科研有助。
2 新型赖氨酸翻译后修饰的结构与分类
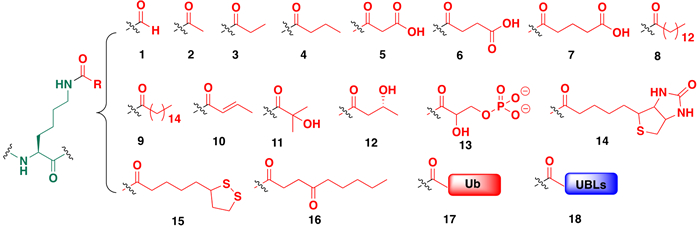
图1
2.1 烷基酰化修饰
图2
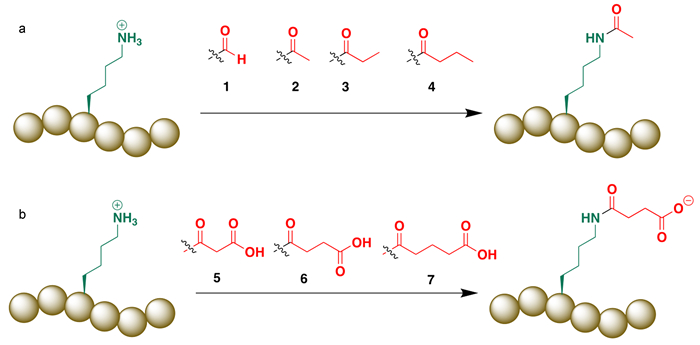
图2
烷基酰化修饰和阴离子酰化修饰对天然蛋白中赖氨酸侧链在生理条件下携带电荷情况的影响
(a)基本酰基化可以屏蔽原有的正电荷;(b)三种含有羧基的酰基化可以逆转电荷情况而携带负电荷
2.2 阴离子酰化修饰
2.3 长链酰化修饰/脂肪酰化修饰
天然蛋白质中存在一类较为特别的酰基化修饰模式,即长烷基链修饰或脂肪酰化修饰(Lipidation)。常见的两类赖氨酸脂肪酰化修饰包括豆蔻酰化(Myristoylation)(图3 8)与棕榈酰化(Palmitoylation)(图3 9)。以前者为例,目前已有若干例子被报道是蛋白质的赖氨酸豆蔻酰化修饰。例如重要的细胞因子肿瘤坏死因子(Tumor Necrosis Factor α, TNF α)[11]、调控免疫应答与炎症反应的重要细胞因子蛋白白细胞介素1α (Cytokine Interleukin 1α,IL-1α)[12]等都含有赖氨酸豆蔻酰化修饰。其中,赖氨酸豆蔻酰化修饰(图3 a)与N末段豆蔻酰化修饰(图3 c)共同包含于“N-豆蔻酰化修饰”[13],而“N-豆蔻酰化修饰”与半胱氨酸侧链巯基的“S-棕榈酰化修饰”(图3 b)是两类主要的蛋白质脂肪酰化修饰模式[14],但是其具体功能与机制尚有待进一步研究[15]。
图3
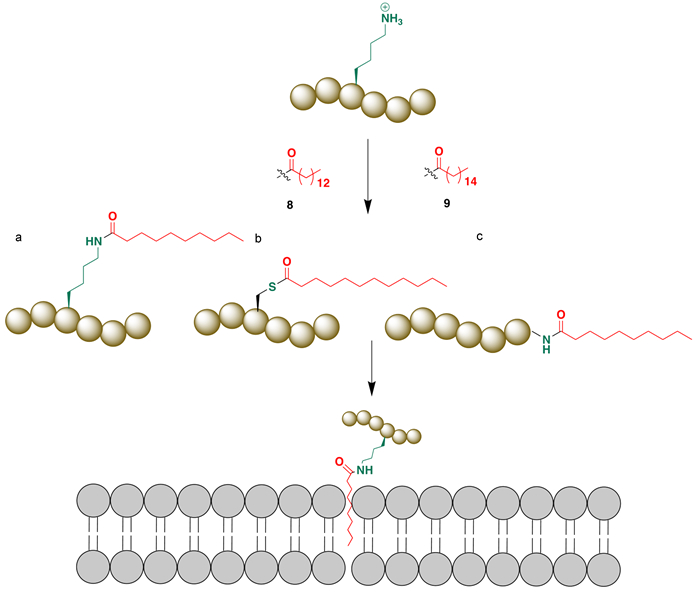
图3
三种脂肪酰化修饰的结构与其对蛋白质分布的影响(其中碳链长度仅为示意)
(a)赖氨酸豆蔻酰化修饰;(b)半胱氨酸豆蔻酰化修饰;(c) N-末端豆蔻酰化修饰
2.4 其他小分子酰基化修饰
除了前文所述,还有一些结构相对特殊的酰基化翻译后修饰模式,由于其含有除了羧基以外的官能团,不能归类于前面三类,故而单独列出。由于种类较多且发现较新,大部分还缺乏系统性研究,故而在此略述。
图4
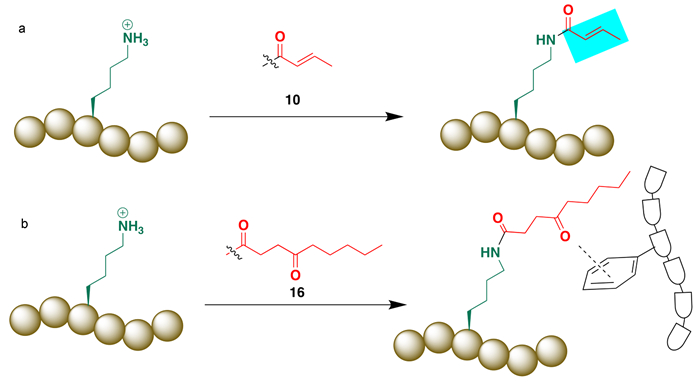
图4
赖氨酸α, β-反丁烯酰化修饰与4-氧代壬酰化修饰对底物蛋白物理有机化学性质的影响示意图
(a) α, β-反丁烯酰化修饰的平面结构;(b) 4-氧代壬酰化修饰对底物蛋白物理有机化学性质的影响
2.5 小蛋白酰基化修饰
前文所提及的都是小分子酰基化修饰。除此之外还有一些多肽或小蛋白质的修饰模式,最为重要的就是赖氨酸的泛素化修饰(ubiquitination)(图1 17)。如果说前面提到的小分子酰基化修饰是对蛋白质底物结构与功能进行精细的调控,那么泛素化修饰可能是对底物蛋白质的功能甚至是“命运”最为至关重要的决定因素[24]。泛素是一个含有76个氨基酸且序列高度保守的小型蛋白质,其通过C-末端的甘氨酸与底物蛋白的赖氨酸形成酰胺键键联。而泛素化的蛋白还可以进一步形成多泛素化。由于泛素含有7个赖氨酸,同样是C-末端与赖氨酸侧链形成的异肽键连接,泛素-泛素的连接方式可以多种多样。高度泛素化的底物蛋白会被26S的蛋白酶体所降解,而这一泛素-蛋白酶体系统也参与了众多重要的细胞过程,如细胞分裂、DNA修复等等。人们进一步发现了泛素化修饰的形成与脱去对应的酶系与机制。
3 赖氨酸翻译后修饰的后续研究
前文中我们简要介绍了多类新型的赖氨酸翻译后修饰模式的结构和主要特征。本部分简要介绍其对应的研究手段。
3.1 串级质谱与蛋白质组学
3.2 蛋白质化学生物学
此外,后续研究需要使用含有均一翻译后修饰的蛋白质,一个前提条件是制备这些含有特定翻译后修饰的均质蛋白。而经典的异源表达的策略无法实现对翻译后修饰的控制。故而,如何高效且便捷地实现天然蛋白中的特定位点的赖氨酸酰基化成为化学生物学家的一项重大挑战[28]。利用蛋白质全合成和半合成手段,我们可以直接制备含有任何异源结构的蛋白质[29]。此外,化学生物学家还发展出多种其他策略,如生物正交反应制备翻译后修饰类似物、密码子替代法直接引入非天然氨基酸或引入前提氨基酸进行后续修饰等手段[30]。通过以上化学方法,我们可以有效地获得具有单一位点翻译后修饰赖氨酸的蛋白质样品,这对于后续的去翻译后修饰酶活性测试、蛋白-蛋白相互作用的钓取与结构生物学研究等生物性质研究极为重要。
4 结论与展望
作为生物化学与化学生物学的交叉前沿,蛋白质的各类翻译后修饰是后基因组时代的一个重要生命科学问题。这些翻译后修饰模式的多元化可以极大地拓宽原有蛋白质的结构与功能多样性与特殊性。同时,复杂的调控网络将细胞内的新陈代谢过程与基因表达建立起交互的桥梁。尤其是随着串级质谱与蛋白质组学的发展,越来越多的新型翻译后修饰模式被逐渐发现,相关问题的研究更加需要合成化学家与分析化学家的参与[31]。
参考文献


