图2
ABPP探针的结构以及用于蛋白质凝胶电泳分析与质谱检测
图3
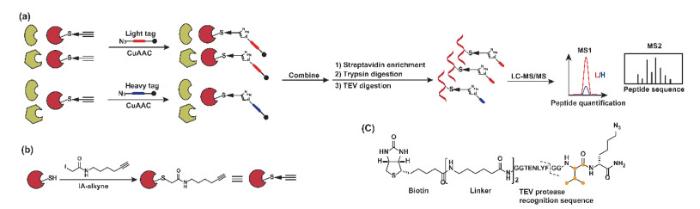
isoTOP-ABPP技术
(a) isoTOP-ABPP平台工作流程;(b) IA-alkyne对巯基的标记;(c) isoTOP-ABPP的TEV蛋白酶可裂解的生物素-叠氮化物标签
图4
基于isoTOP-ABPP的方法测定蛋白质组中半胱氨酸反应活性[9 ]
图6
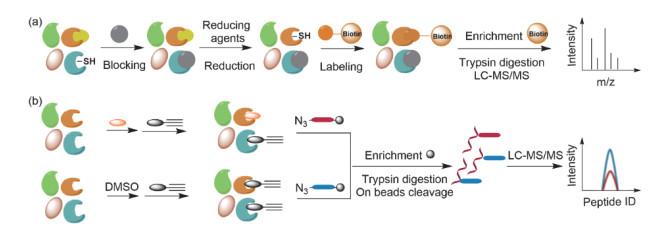
生物素转换方式(a)和竞争标记方式(b)标记蛋白质的翻译后修饰
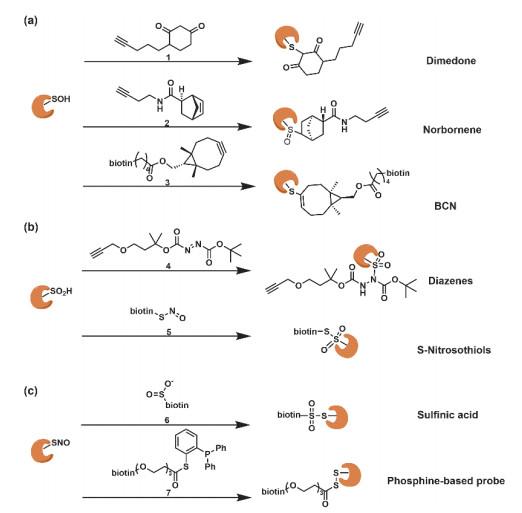
图7
用于蛋白质半胱氨酸翻译后修饰直接检测的ABPP探针
[2]
张晓勤 ; 陈川 ; 方彩云 ; 陆豪杰 . 分析化学 , 2016 , 44 (11 ), 9 .
URL
[本文引用: 1]
[4]
Salmeen A. ; Andersen J. N. ; Myers M. P. ; Meng T. C. ; Hinks J. A. ; Tonks N. K. ; Barford D. Nature 2003 , 423 (6941 ), 769 .
DOI:10.1038/nature01680
[本文引用: 1]
[6]
Nodwell M. B. ; Sieber S. A. Activity-Based Protein Profiling; Springer Verlag: Berlin, Germany 2012 ,
[本文引用: 1]
[7]
Cravatt B. F. ; Wright A. T. ; Kozarich J. W. Annu. Rev. Biochem. 2008 , 77 (1 ), 38 .
[本文引用: 1]
[9]
Weerapana E. ; Wang C. ; Simon G. M. ; Richter F. ; Khare S. ; Dillon M. B. D. ; Bachovchin D. A. ; Mowen K. ; Baker D. ; Cravatt B. F. Nature 2010 , 468 (7325 ), 790 .
DOI:10.1038/nature09472
[本文引用: 2]
[11]
Guo C. J. ; Chang F. Y. ; Wyche T. P. ; Backus K. M. ; Acker T. M. ; Funabashi M. ; Taketani M. ; Donia M. S. ; Nayfach S. ; Pollard K. S. ; et al Cell 2017 , 168 (3 ), 517 .
DOI:10.1016/j.cell.2016.12.021
[本文引用: 1]
[12]
Grossman E. A. ; Ward C. C. ; Spradlin J. N. ; Bateman L. A. ; Huffman T. R. ; Miyamoto D. K. ; Kleinman J. I. ; Nomura D. K. Cell Chem. Biol. 2017 , 24 (11 ), 1368 .
DOI:10.1016/j.chembiol.2017.08.013
[本文引用: 2]
[13]
Blewett M. M. ; Xie J. ; Zaro B. W. ; Backus K. M. ; Altman A. ; Teijaro J. R. ; Cravatt B. F. Sci. Signal. 2016 , 9 (445 )
[本文引用: 1]
[15]
Backus K. M. ; Correia B. E. ; Lum K. M. ; Forli S. ; Horning B. D. ; GonzalezPaez G. E. ; Chatterjee S. ; Lanning B. R. ; Teijaro J. R. ; Olson A. ; et al Nature 2016 , 534 (7608 ), 570 .
DOI:10.1038/nature18002
[本文引用: 1]
[18]
Vinogradova E. V. ; Zhang X. ; Remillard D. ; Lazar D. C. ; Suciu R. M. ; Wang Y. ; Bianco G. ; Yamashita Y. ; Crowley V. M. ; Schafroth M. A. ; et al Cell 2020 , 182 , 1009 .
DOI:10.1016/j.cell.2020.07.001
[本文引用: 1]
[21]
Shannon D. A. ; Banerjee R. ; Webster E. R. ; Bak D. W. ; Wang C. ; Weerapana E. J. Am. Chem. Soc. 2014 , 136 (9 ), 3330 .
DOI:10.1021/ja4116204
[本文引用: 1]
[22]
Abegg D. ; Frei R. ; Cerato L. ; Prasad H. D. ; Wang C. ; Waser J. ; Adibekian A. Angew. Chem. Int. Ed. 2015 , 54 (37 ), 10852 .
DOI:10.1002/anie.201505641
[本文引用: 1]
[23]
Motiwala H. F. ; Kuo Y. H. ; Stinger B. L. ; Palfey B. A. ; Martin B. R. J. Am. Chem. Soc. 2020 , 142 (4 ), 1801 .
DOI:10.1021/jacs.9b08831
[本文引用: 1]
[24]
Tokunaga K. ; Sato M. ; Kuwata K. ; Miura C. ; Fuchida H. ; Matsunaga N. ; Koyanagi S. ; Ohdo S. ; Shindo N. ; Ojida A. J. Am. Chem. Soc. 2020 , 142 (43 ), 18522 .
DOI:10.1021/jacs.0c07490
[本文引用: 1]
[26]
Conibear A. C. Nat. Rev. Chem. 2020 , 4 , 67 .
[本文引用: 1]
[30]
Jaffrey S. R. ; Hediye E. B. ; Ferris C. D. ; Tempst P. ; Snyder S. H. Nat. Cell. Biol. 2001 , 3 , 193 .
DOI:10.1038/35055104
[本文引用: 1]
[32]
Kulkarni R. A. ; Bak D. W. ; Wei D. ; Bergholtz S. E. ; Briney C. A. ; Shrimp J. H. ; Alpsoy A. ; Thorpe A. L. ; Bavari A. E. ; Crooks D. R. ; et al Nat. Chem. Biol. 2019 , 15 (4 ), 391 .
DOI:10.1038/s41589-018-0217-y
[本文引用: 1]
[33]
Qin W. ; Qin K. ; Zhang Y. ; Jia W. ; Chen Y. ; Cheng B. ; Peng L. ; Chen N. ; Liu Y. ; Zhou W. ; et al Nat. Chem. Biol. 2019 , 15 (10 ), 983 .
DOI:10.1038/s41589-019-0323-5
[本文引用: 1]
[36]
Chao M. R. ; Evans; M. D. ; Hu C. W. ; Ji Y. ; Møller P. ; Rossner P. ; Cooke M. S. Redox. Biol 2021 , 42 , 2213 .
[本文引用: 1]
[39]
Lisa J. A. ; Bruno L. O. ; Michael J. D. ; Tara L. P. ; Michael V. P. ; Goncalo J. L. B. ; Justin M. C. ACS. Chem. Biol. 2019 , 14 (4 ), 594 .
DOI:10.1021/acschembio.8b01104
[本文引用: 1]
[40]
Alcock L. J. ; Langini M. ; Stühler K. ; Remke M. ; Perkins M. V. ; Bernardes G. J. L. ; Chalker J. M. ChemBioChem 2019 , 21 (9 ), 1329 .
[本文引用: 1]
[41]
Poole T. H. ; Reisz J. A. ; Zhao W. L. ; Poole L. B. ; Furdui C. M. ; King S. B. J. Am. Chem. Soc. 2014 , 136 (17 ), 6167 .
DOI:10.1021/ja500364r
[本文引用: 1]
[46]
Akter S. ; Fu L. ; Jung Y. ; Conte M. L. ; Lawson J. R. ; Lowther W. T. ; Sun R. ; Liu K. ; Yang J. ; Carroll K. S. Nat. Chem. Biol. 2018 , 14 (11 ), 995 .
DOI:10.1038/s41589-018-0116-2
[本文引用: 1]
[47]
Majmudar J. D. ; Konopko A. M. ; Labby K. J. ; Tom C. T. M. B. ; Crellin J. E. ; Prakash A. ; Martin. B. R. J. Am. Chem. Soc. 2016 , 138 (6 ), 1852 .
DOI:10.1021/jacs.5b06806
[本文引用: 1]
[53]
Qin W. ; Zhang Y. ; Tang H. ; Liu D. ; Chen Y. ; Liu Y. ; Wang C. J. Am. Chem. Soc. 2016 , 142 (25 ), 10894 .
[本文引用: 1]
1
2015
... 蛋白质作为细胞、组织的重要成分,是生命过程中生理功能的重要执行者和生命现象的直接体现者,对蛋白质功能活性的研究将有助于阐明其对生理或病理过程的调控机制.蛋白质组学能够分析获取生命过程中成千上万种蛋白功能活性的信息,可以在大规模水平上鉴定蛋白质的表达水平、修饰水平、相互作用等.在后基因组时代,如何准确、快速地解析复杂生物体系内蛋白质的功能活性,揭示蛋白质参与生命活动的方式,了解这些功能活性的变化对生命过程产生的影响,已经成为蛋白质组学亟需解决的一个重要科学问题[1 ] . ...
1
2016
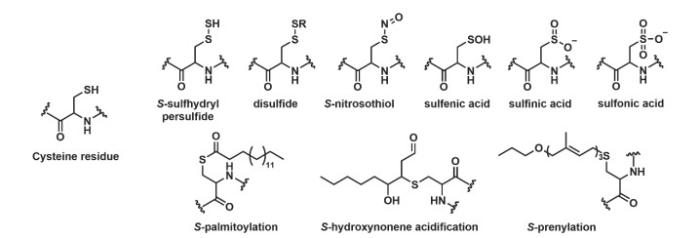
... 半胱氨酸(Cysteine,Cys)是存在于多数蛋白质中频次较低的氨基酸(1%–2%),但由于其侧链巯基的化学活泼性使其展现出较强的内在活性,也成为多种蛋白质的功能活性位点[2 ] .蛋白质半胱氨酸残基作为细胞内的还原性物质和与小分子介质作用的重要主体,对于维持和调控细胞内的氧化还原内环境起着重要作用[3 ] .它们参与调控细胞识别、信号转导等多种生理过程,并与生物体内还原性物质变化的相关疾病有着密切的联系[4 ] .此外,蛋白质半胱氨酸上的巯基对细胞内局部环境的变化很敏感,可以发生多种翻译后修饰的类型[5 ] ,如硫巯化(S -sulfhydration,―SSH)、亚硝基化(S -nitrosylation,―SNO)、次磺酸化(S -sulfenylation,―SOH)、亚磺酸化(S -sulfinylation,―SO2 H)、棕榈酰化(S -palmitoylation)、异戊二烯化(S -prenylation)等(图 1 ).这些翻译后修饰能够快速、动态地调控蛋白质的构型、活性,拓展生物体内蛋白质的功能多样性,并能够影响到人类许多重要疾病的发生发展.因此,对蛋白质半胱氨酸及其翻译后修饰的研究具有十分重要的生物学意义,一直是持续不断的科研热点. ...
1
2004
... 半胱氨酸(Cysteine,Cys)是存在于多数蛋白质中频次较低的氨基酸(1%–2%),但由于其侧链巯基的化学活泼性使其展现出较强的内在活性,也成为多种蛋白质的功能活性位点[2 ] .蛋白质半胱氨酸残基作为细胞内的还原性物质和与小分子介质作用的重要主体,对于维持和调控细胞内的氧化还原内环境起着重要作用[3 ] .它们参与调控细胞识别、信号转导等多种生理过程,并与生物体内还原性物质变化的相关疾病有着密切的联系[4 ] .此外,蛋白质半胱氨酸上的巯基对细胞内局部环境的变化很敏感,可以发生多种翻译后修饰的类型[5 ] ,如硫巯化(S -sulfhydration,―SSH)、亚硝基化(S -nitrosylation,―SNO)、次磺酸化(S -sulfenylation,―SOH)、亚磺酸化(S -sulfinylation,―SO2 H)、棕榈酰化(S -palmitoylation)、异戊二烯化(S -prenylation)等(图 1 ).这些翻译后修饰能够快速、动态地调控蛋白质的构型、活性,拓展生物体内蛋白质的功能多样性,并能够影响到人类许多重要疾病的发生发展.因此,对蛋白质半胱氨酸及其翻译后修饰的研究具有十分重要的生物学意义,一直是持续不断的科研热点. ...
1
2003
... 半胱氨酸(Cysteine,Cys)是存在于多数蛋白质中频次较低的氨基酸(1%–2%),但由于其侧链巯基的化学活泼性使其展现出较强的内在活性,也成为多种蛋白质的功能活性位点[2 ] .蛋白质半胱氨酸残基作为细胞内的还原性物质和与小分子介质作用的重要主体,对于维持和调控细胞内的氧化还原内环境起着重要作用[3 ] .它们参与调控细胞识别、信号转导等多种生理过程,并与生物体内还原性物质变化的相关疾病有着密切的联系[4 ] .此外,蛋白质半胱氨酸上的巯基对细胞内局部环境的变化很敏感,可以发生多种翻译后修饰的类型[5 ] ,如硫巯化(S -sulfhydration,―SSH)、亚硝基化(S -nitrosylation,―SNO)、次磺酸化(S -sulfenylation,―SOH)、亚磺酸化(S -sulfinylation,―SO2 H)、棕榈酰化(S -palmitoylation)、异戊二烯化(S -prenylation)等(图 1 ).这些翻译后修饰能够快速、动态地调控蛋白质的构型、活性,拓展生物体内蛋白质的功能多样性,并能够影响到人类许多重要疾病的发生发展.因此,对蛋白质半胱氨酸及其翻译后修饰的研究具有十分重要的生物学意义,一直是持续不断的科研热点. ...
1
2020
... 半胱氨酸(Cysteine,Cys)是存在于多数蛋白质中频次较低的氨基酸(1%–2%),但由于其侧链巯基的化学活泼性使其展现出较强的内在活性,也成为多种蛋白质的功能活性位点[2 ] .蛋白质半胱氨酸残基作为细胞内的还原性物质和与小分子介质作用的重要主体,对于维持和调控细胞内的氧化还原内环境起着重要作用[3 ] .它们参与调控细胞识别、信号转导等多种生理过程,并与生物体内还原性物质变化的相关疾病有着密切的联系[4 ] .此外,蛋白质半胱氨酸上的巯基对细胞内局部环境的变化很敏感,可以发生多种翻译后修饰的类型[5 ] ,如硫巯化(S -sulfhydration,―SSH)、亚硝基化(S -nitrosylation,―SNO)、次磺酸化(S -sulfenylation,―SOH)、亚磺酸化(S -sulfinylation,―SO2 H)、棕榈酰化(S -palmitoylation)、异戊二烯化(S -prenylation)等(图 1 ).这些翻译后修饰能够快速、动态地调控蛋白质的构型、活性,拓展生物体内蛋白质的功能多样性,并能够影响到人类许多重要疾病的发生发展.因此,对蛋白质半胱氨酸及其翻译后修饰的研究具有十分重要的生物学意义,一直是持续不断的科研热点. ...
1
2012
... 近年来,质谱技术的迅速发展,为蛋白质研究提供了高通量、高灵敏和高分辨的分析平台,并已成为研究蛋白质组学最具突破性、应用最广泛的技术手段之一.利用不同化学探针对蛋白组中的活性位点进行标记,结合定量化学蛋白质组学的活性蛋白表达谱分析方法(ABPP)应运而生[6 ] .该方法致力于在复杂的生命体系中系统地鉴定某些具有特定功能的蛋白质分子(图 2 ),并且这些功能蛋白质的丰度往往不高,其他方法难以检测.ABPP方法利用化学活性探针共价连接某些蛋白质中的氨基酸位点,进一步利用探针中的报告基团进行富集,用于凝胶电泳分析或质谱分析鉴定被化学探针标记的蛋白组分以及潜在功能位点,进而揭示它们的分子功能[7 ] . ...
1
2008
... 近年来,质谱技术的迅速发展,为蛋白质研究提供了高通量、高灵敏和高分辨的分析平台,并已成为研究蛋白质组学最具突破性、应用最广泛的技术手段之一.利用不同化学探针对蛋白组中的活性位点进行标记,结合定量化学蛋白质组学的活性蛋白表达谱分析方法(ABPP)应运而生[6 ] .该方法致力于在复杂的生命体系中系统地鉴定某些具有特定功能的蛋白质分子(图 2 ),并且这些功能蛋白质的丰度往往不高,其他方法难以检测.ABPP方法利用化学活性探针共价连接某些蛋白质中的氨基酸位点,进一步利用探针中的报告基团进行富集,用于凝胶电泳分析或质谱分析鉴定被化学探针标记的蛋白组分以及潜在功能位点,进而揭示它们的分子功能[7 ] . ...
1
2019
... 碘乙酰胺的炔基衍生化探针(IA-alkyne)是一种在ABPP中应用十分广泛的亲电小分子探针,其反应基团主要与蛋白质半胱氨酸残基中的巯基共价交联,标签基团通过点击反应偶联荧光团或者生物素,进而对靶向的蛋白质进行可视化检测与富集.同位素标记串联正交水解酶-活性蛋白表达谱方法(isotopic tandem orthogonal proteolysis-ABPP,isoTOP-ABPP)是目前主要用于活性蛋白表达谱分析的定量方法,是一种在复杂的生物系统中直接探究蛋白质活性的开创性技术(图 3a ) [8 ] .isoTOP-ABPP方法使用IA-alkyne探针标记蛋白质半胱氨酸进行定量化学蛋白组学分析主要包括以下步骤:(1) 用IA-alkyne处理细胞裂解物以标记活性半胱氨酸(图 3b );(2) 使用铜催化的叠氮-炔烃环加成反应(Copper-Catalyzed Azide-Alkyne Cycloaddition,CuAAC)将对照和实验样品中IA-alkyne标记的半胱氨酸蛋白与同位素化的可裂解生物素-叠氮化物标签偶联(图 3c );(3) 在链霉亲和素珠上富集IA-alkyne标记的蛋白,然后进行胰酶消化,并进行linker切割以释放IA-alkyne标记的肽;(4) 使用液相色谱-串联质谱联用技术(Liquid chromatography tandem-mass spectrometry,LC-MS/MS)分析所得的同位素标记的轻、重肽对,以轻重肽段的峰面积比值对两个样品的反应活性差异进行定量. ...
2
2010
... 2010年,Scripps研究所Benjamin F. Cravatt教授课题组利用不同浓度的IA-alkyne探针对生理条件下的蛋白组裂解液进行标记,通过isoTOP-ABPP方法(图 4 )系统地分析了MCF-7等多种人类癌症细胞系和小鼠组织的蛋白组内半胱氨酸的内在反应性,并发现半胱氨酸的内在反应活性与其功能具有非常明显的关联性[9 ] .该方法不仅可以对已知功能蛋白酶催化中心的半胱氨酸的活性进行监测,还发掘出一大批内在化学反应活性很高、功能尚待研究的半胱氨酸位点.基于之前的研究基础,该课题组利用isoTOP-ABPP策略的位点特异性识别和定量能力,开发了一种竞争性的isoTOP-ABPP策略来鉴定脂质衍生亲电试剂(lipid-derived electrophiles,LDEs)诱导的半胱氨酸修饰.LDEs能够共价修饰蛋白质中的半胱氨酸,因此能够与IA-alkyne探针进行竞争标记.LDEs对蛋白质中半胱氨酸的修饰程度最终通过isoTOP-ABPP策略的定量比值表示出来.研究人员通过几组平行实验的定量结果,精确地鉴定到了几种LDEs修饰的半胱氨酸位点,并揭示出了一些对LDEs具有高反应活性的半胱氨酸残基[10 ] .此外,该策略还被拓展到鉴定微生物衍生的活性代谢物二肽醛对蛋白组中半胱氨酸的修饰[11 ] . ...
... [
9 ]
![]()
值得注意的是,竞争性isoTOP-ABPP策略不仅可用于研究代谢产物对蛋白组中半胱氨酸的修饰,而且还可用于研究天然产物或共价药物所修饰的半胱氨酸[12 , 13 ] .例如,Withaferin A是一种已知具有癌症抗增殖活性的亲电性天然产物.Grossman等人评估了Withaferin A的靶向蛋白组的反应活性,表明Withaferin A激活了肿瘤抑制酶磷酸酶PP2A [12 ] .Whitby等人通过isoTOP-ABPP方法研究了用肝毒性药物如对乙酰氨基酚、曲格列酮、氯氮平和亚硝酸处理后,体内产生的反应性代谢产物对蛋白质组的标记[14 ] .同时该策略也被用来评估小分子片段库中小分子标记半胱氨酸的反应活性,并从大量被认为不具有成药性的蛋白质中发现了独特标记位点,如Backus等人使用isoTOP-ABPP方法评估了包含氯乙酰胺和丙烯酰胺等亲电基团的52个小分子对蛋白质半胱氨酸的反应活性[15 ] . ...
1
2014
... 2010年,Scripps研究所Benjamin F. Cravatt教授课题组利用不同浓度的IA-alkyne探针对生理条件下的蛋白组裂解液进行标记,通过isoTOP-ABPP方法(图 4 )系统地分析了MCF-7等多种人类癌症细胞系和小鼠组织的蛋白组内半胱氨酸的内在反应性,并发现半胱氨酸的内在反应活性与其功能具有非常明显的关联性[9 ] .该方法不仅可以对已知功能蛋白酶催化中心的半胱氨酸的活性进行监测,还发掘出一大批内在化学反应活性很高、功能尚待研究的半胱氨酸位点.基于之前的研究基础,该课题组利用isoTOP-ABPP策略的位点特异性识别和定量能力,开发了一种竞争性的isoTOP-ABPP策略来鉴定脂质衍生亲电试剂(lipid-derived electrophiles,LDEs)诱导的半胱氨酸修饰.LDEs能够共价修饰蛋白质中的半胱氨酸,因此能够与IA-alkyne探针进行竞争标记.LDEs对蛋白质中半胱氨酸的修饰程度最终通过isoTOP-ABPP策略的定量比值表示出来.研究人员通过几组平行实验的定量结果,精确地鉴定到了几种LDEs修饰的半胱氨酸位点,并揭示出了一些对LDEs具有高反应活性的半胱氨酸残基[10 ] .此外,该策略还被拓展到鉴定微生物衍生的活性代谢物二肽醛对蛋白组中半胱氨酸的修饰[11 ] . ...
1
2017
... 2010年,Scripps研究所Benjamin F. Cravatt教授课题组利用不同浓度的IA-alkyne探针对生理条件下的蛋白组裂解液进行标记,通过isoTOP-ABPP方法(图 4 )系统地分析了MCF-7等多种人类癌症细胞系和小鼠组织的蛋白组内半胱氨酸的内在反应性,并发现半胱氨酸的内在反应活性与其功能具有非常明显的关联性[9 ] .该方法不仅可以对已知功能蛋白酶催化中心的半胱氨酸的活性进行监测,还发掘出一大批内在化学反应活性很高、功能尚待研究的半胱氨酸位点.基于之前的研究基础,该课题组利用isoTOP-ABPP策略的位点特异性识别和定量能力,开发了一种竞争性的isoTOP-ABPP策略来鉴定脂质衍生亲电试剂(lipid-derived electrophiles,LDEs)诱导的半胱氨酸修饰.LDEs能够共价修饰蛋白质中的半胱氨酸,因此能够与IA-alkyne探针进行竞争标记.LDEs对蛋白质中半胱氨酸的修饰程度最终通过isoTOP-ABPP策略的定量比值表示出来.研究人员通过几组平行实验的定量结果,精确地鉴定到了几种LDEs修饰的半胱氨酸位点,并揭示出了一些对LDEs具有高反应活性的半胱氨酸残基[10 ] .此外,该策略还被拓展到鉴定微生物衍生的活性代谢物二肽醛对蛋白组中半胱氨酸的修饰[11 ] . ...
2
2017
... 值得注意的是,竞争性isoTOP-ABPP策略不仅可用于研究代谢产物对蛋白组中半胱氨酸的修饰,而且还可用于研究天然产物或共价药物所修饰的半胱氨酸[12 , 13 ] .例如,Withaferin A是一种已知具有癌症抗增殖活性的亲电性天然产物.Grossman等人评估了Withaferin A的靶向蛋白组的反应活性,表明Withaferin A激活了肿瘤抑制酶磷酸酶PP2A [12 ] .Whitby等人通过isoTOP-ABPP方法研究了用肝毒性药物如对乙酰氨基酚、曲格列酮、氯氮平和亚硝酸处理后,体内产生的反应性代谢产物对蛋白质组的标记[14 ] .同时该策略也被用来评估小分子片段库中小分子标记半胱氨酸的反应活性,并从大量被认为不具有成药性的蛋白质中发现了独特标记位点,如Backus等人使用isoTOP-ABPP方法评估了包含氯乙酰胺和丙烯酰胺等亲电基团的52个小分子对蛋白质半胱氨酸的反应活性[15 ] . ...
... [12 ].Whitby等人通过isoTOP-ABPP方法研究了用肝毒性药物如对乙酰氨基酚、曲格列酮、氯氮平和亚硝酸处理后,体内产生的反应性代谢产物对蛋白质组的标记[14 ] .同时该策略也被用来评估小分子片段库中小分子标记半胱氨酸的反应活性,并从大量被认为不具有成药性的蛋白质中发现了独特标记位点,如Backus等人使用isoTOP-ABPP方法评估了包含氯乙酰胺和丙烯酰胺等亲电基团的52个小分子对蛋白质半胱氨酸的反应活性[15 ] . ...
1
2016
... 值得注意的是,竞争性isoTOP-ABPP策略不仅可用于研究代谢产物对蛋白组中半胱氨酸的修饰,而且还可用于研究天然产物或共价药物所修饰的半胱氨酸[12 , 13 ] .例如,Withaferin A是一种已知具有癌症抗增殖活性的亲电性天然产物.Grossman等人评估了Withaferin A的靶向蛋白组的反应活性,表明Withaferin A激活了肿瘤抑制酶磷酸酶PP2A [12 ] .Whitby等人通过isoTOP-ABPP方法研究了用肝毒性药物如对乙酰氨基酚、曲格列酮、氯氮平和亚硝酸处理后,体内产生的反应性代谢产物对蛋白质组的标记[14 ] .同时该策略也被用来评估小分子片段库中小分子标记半胱氨酸的反应活性,并从大量被认为不具有成药性的蛋白质中发现了独特标记位点,如Backus等人使用isoTOP-ABPP方法评估了包含氯乙酰胺和丙烯酰胺等亲电基团的52个小分子对蛋白质半胱氨酸的反应活性[15 ] . ...
1
2017
... 值得注意的是,竞争性isoTOP-ABPP策略不仅可用于研究代谢产物对蛋白组中半胱氨酸的修饰,而且还可用于研究天然产物或共价药物所修饰的半胱氨酸[12 , 13 ] .例如,Withaferin A是一种已知具有癌症抗增殖活性的亲电性天然产物.Grossman等人评估了Withaferin A的靶向蛋白组的反应活性,表明Withaferin A激活了肿瘤抑制酶磷酸酶PP2A [12 ] .Whitby等人通过isoTOP-ABPP方法研究了用肝毒性药物如对乙酰氨基酚、曲格列酮、氯氮平和亚硝酸处理后,体内产生的反应性代谢产物对蛋白质组的标记[14 ] .同时该策略也被用来评估小分子片段库中小分子标记半胱氨酸的反应活性,并从大量被认为不具有成药性的蛋白质中发现了独特标记位点,如Backus等人使用isoTOP-ABPP方法评估了包含氯乙酰胺和丙烯酰胺等亲电基团的52个小分子对蛋白质半胱氨酸的反应活性[15 ] . ...
1
2016
... 值得注意的是,竞争性isoTOP-ABPP策略不仅可用于研究代谢产物对蛋白组中半胱氨酸的修饰,而且还可用于研究天然产物或共价药物所修饰的半胱氨酸[12 , 13 ] .例如,Withaferin A是一种已知具有癌症抗增殖活性的亲电性天然产物.Grossman等人评估了Withaferin A的靶向蛋白组的反应活性,表明Withaferin A激活了肿瘤抑制酶磷酸酶PP2A [12 ] .Whitby等人通过isoTOP-ABPP方法研究了用肝毒性药物如对乙酰氨基酚、曲格列酮、氯氮平和亚硝酸处理后,体内产生的反应性代谢产物对蛋白质组的标记[14 ] .同时该策略也被用来评估小分子片段库中小分子标记半胱氨酸的反应活性,并从大量被认为不具有成药性的蛋白质中发现了独特标记位点,如Backus等人使用isoTOP-ABPP方法评估了包含氯乙酰胺和丙烯酰胺等亲电基团的52个小分子对蛋白质半胱氨酸的反应活性[15 ] . ...
1
2018
... 近些年,随着生物质谱的飞速发展,研究人员在isoTOP-ABPP的基础上融合了多种定量方法衍生出多种定量化学蛋白质组学策略用于鉴定蛋白质半胱氨酸活性,翻译后修饰水平和药物筛选等.如王初课题组结合稳定同位素二甲基化标记(stable isotope dimethyl labeling)开发了rd-TOP-ABPP策略[16 ] .杨靖等人利用一种碘乙酰胺类探针IMP结合iTRAQ (isobaric tags for relative and absolute quantification)标记定量法构建了多组分硫醇反应谱分析(multiplexed thiol reactivity profiling,MTRP)方法来鉴定一些亲电天然产物的蛋白靶标[17 ] .Vinogradova等人利用脱硫生物素-碘乙酰胺探针(iodoacetamide-desthio-biotin,IA-DTB)结合串联质谱标签(Tandem mass tags,TMT)标记和三级质谱(MS3 )定量模式绘制了人类初级T细胞中易受亲电小分子共价修饰的蛋白质半胱氨酸图谱[18 ] .这些新的定量化学蛋白质组学方法极大地扩展了针对蛋白质半胱氨酸的相关研究. ...
1
2017
... 近些年,随着生物质谱的飞速发展,研究人员在isoTOP-ABPP的基础上融合了多种定量方法衍生出多种定量化学蛋白质组学策略用于鉴定蛋白质半胱氨酸活性,翻译后修饰水平和药物筛选等.如王初课题组结合稳定同位素二甲基化标记(stable isotope dimethyl labeling)开发了rd-TOP-ABPP策略[16 ] .杨靖等人利用一种碘乙酰胺类探针IMP结合iTRAQ (isobaric tags for relative and absolute quantification)标记定量法构建了多组分硫醇反应谱分析(multiplexed thiol reactivity profiling,MTRP)方法来鉴定一些亲电天然产物的蛋白靶标[17 ] .Vinogradova等人利用脱硫生物素-碘乙酰胺探针(iodoacetamide-desthio-biotin,IA-DTB)结合串联质谱标签(Tandem mass tags,TMT)标记和三级质谱(MS3 )定量模式绘制了人类初级T细胞中易受亲电小分子共价修饰的蛋白质半胱氨酸图谱[18 ] .这些新的定量化学蛋白质组学方法极大地扩展了针对蛋白质半胱氨酸的相关研究. ...
1
2020
... 近些年,随着生物质谱的飞速发展,研究人员在isoTOP-ABPP的基础上融合了多种定量方法衍生出多种定量化学蛋白质组学策略用于鉴定蛋白质半胱氨酸活性,翻译后修饰水平和药物筛选等.如王初课题组结合稳定同位素二甲基化标记(stable isotope dimethyl labeling)开发了rd-TOP-ABPP策略[16 ] .杨靖等人利用一种碘乙酰胺类探针IMP结合iTRAQ (isobaric tags for relative and absolute quantification)标记定量法构建了多组分硫醇反应谱分析(multiplexed thiol reactivity profiling,MTRP)方法来鉴定一些亲电天然产物的蛋白靶标[17 ] .Vinogradova等人利用脱硫生物素-碘乙酰胺探针(iodoacetamide-desthio-biotin,IA-DTB)结合串联质谱标签(Tandem mass tags,TMT)标记和三级质谱(MS3 )定量模式绘制了人类初级T细胞中易受亲电小分子共价修饰的蛋白质半胱氨酸图谱[18 ] .这些新的定量化学蛋白质组学方法极大地扩展了针对蛋白质半胱氨酸的相关研究. ...
1
2015
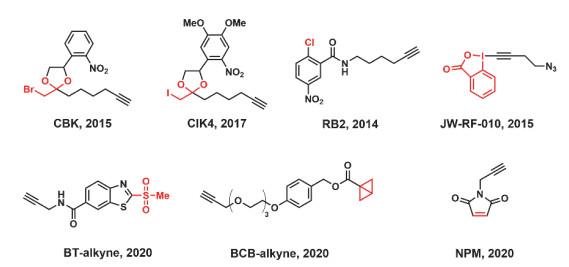
... 与IA-alkyne相比,光笼式溴代甲基酮(CBK) [19 ] 和碘代甲基酮(CIK4) [20 ] 显示出较低的细胞毒性,并可通过对空间和时间的控制来分析活细胞中的半胱氨酸(图 5 ).CBK被用来监测A431细胞在表皮生长因子(the epidermal growth factor,EGF)刺激下释放活性氧时半胱氨酸反应性的变化.同时人们还开发了卤代乙酰胺亲电试剂的替代品,包括芳基卤化物如对氯硝基苯RB2 [21 ] ,和高价碘试剂如乙炔基苯并恶唑啉酮(JW-RF-010) (图 5 ) [22 ] .JW-RF-010在水中稳定,能够在生理条件下对半胱氨酸进行烷基化,具有较高的化学选择性.并且研究人员通过该探针成功地鉴定了姜黄素在HeLa细胞中的生物靶点,证明了其可作为与IA-alkyne探针标记结果互补的新型蛋白质半胱氨酸标记探针.近年来,研究人员还开发出能够根据反应基团附近取代基的不同来调谐对蛋白质半胱氨酸的标记能力的探针.如Brent R. Martin教授课题组尝试在苯并噻唑上修饰不同的取代基来探究是否能改良其反应活性,合成了一系列苯或砜上的取代衍生物.结果发现苯环的吸电子基团能够使反应活性变强,而给电子基团则能够减弱活性.随后该课题组还利用两种脱硫生物素化的探针(BT-desthiobiotin和IA-desthiobiotin)进行了HeLa细胞的活细胞标记,质谱检测结果显示两者标记肽段仅有50%重叠,总共可标记约5000个独立的半胱氨酸肽段,且对于Cys也有很强的选择性[23 ] .Tokunaga等人利用双环丁烷(BCB)的桥头碳被亲核试剂进攻时会发生开环的性质,设计合成了多种BCB类化合物,并应用化学蛋白质组学技术对BCB类型探针的反应特异性进行了评估.同时还通过对BCB类探针反应性的调节发现反应性较强的BCB酰胺可以用于半胱氨酸的广谱标记,而较弱的BCB酰胺则适合进行共价抑制剂的开发[24 ] .近期还有课题组使用马来酰亚胺激活的巯基反应探针(NPM)来探究位点特异性半胱氨酸反应性从超过800多个蛋白质中获得了1500多个独特的半胱氨酸位点的相对定量结果(图 5 ),提出了一种在氧化应激反应中测定半胱氨酸反应性的方法[25 ] . ...
1
2017
... 与IA-alkyne相比,光笼式溴代甲基酮(CBK) [19 ] 和碘代甲基酮(CIK4) [20 ] 显示出较低的细胞毒性,并可通过对空间和时间的控制来分析活细胞中的半胱氨酸(图 5 ).CBK被用来监测A431细胞在表皮生长因子(the epidermal growth factor,EGF)刺激下释放活性氧时半胱氨酸反应性的变化.同时人们还开发了卤代乙酰胺亲电试剂的替代品,包括芳基卤化物如对氯硝基苯RB2 [21 ] ,和高价碘试剂如乙炔基苯并恶唑啉酮(JW-RF-010) (图 5 ) [22 ] .JW-RF-010在水中稳定,能够在生理条件下对半胱氨酸进行烷基化,具有较高的化学选择性.并且研究人员通过该探针成功地鉴定了姜黄素在HeLa细胞中的生物靶点,证明了其可作为与IA-alkyne探针标记结果互补的新型蛋白质半胱氨酸标记探针.近年来,研究人员还开发出能够根据反应基团附近取代基的不同来调谐对蛋白质半胱氨酸的标记能力的探针.如Brent R. Martin教授课题组尝试在苯并噻唑上修饰不同的取代基来探究是否能改良其反应活性,合成了一系列苯或砜上的取代衍生物.结果发现苯环的吸电子基团能够使反应活性变强,而给电子基团则能够减弱活性.随后该课题组还利用两种脱硫生物素化的探针(BT-desthiobiotin和IA-desthiobiotin)进行了HeLa细胞的活细胞标记,质谱检测结果显示两者标记肽段仅有50%重叠,总共可标记约5000个独立的半胱氨酸肽段,且对于Cys也有很强的选择性[23 ] .Tokunaga等人利用双环丁烷(BCB)的桥头碳被亲核试剂进攻时会发生开环的性质,设计合成了多种BCB类化合物,并应用化学蛋白质组学技术对BCB类型探针的反应特异性进行了评估.同时还通过对BCB类探针反应性的调节发现反应性较强的BCB酰胺可以用于半胱氨酸的广谱标记,而较弱的BCB酰胺则适合进行共价抑制剂的开发[24 ] .近期还有课题组使用马来酰亚胺激活的巯基反应探针(NPM)来探究位点特异性半胱氨酸反应性从超过800多个蛋白质中获得了1500多个独特的半胱氨酸位点的相对定量结果(图 5 ),提出了一种在氧化应激反应中测定半胱氨酸反应性的方法[25 ] . ...
1
2014
... 与IA-alkyne相比,光笼式溴代甲基酮(CBK) [19 ] 和碘代甲基酮(CIK4) [20 ] 显示出较低的细胞毒性,并可通过对空间和时间的控制来分析活细胞中的半胱氨酸(图 5 ).CBK被用来监测A431细胞在表皮生长因子(the epidermal growth factor,EGF)刺激下释放活性氧时半胱氨酸反应性的变化.同时人们还开发了卤代乙酰胺亲电试剂的替代品,包括芳基卤化物如对氯硝基苯RB2 [21 ] ,和高价碘试剂如乙炔基苯并恶唑啉酮(JW-RF-010) (图 5 ) [22 ] .JW-RF-010在水中稳定,能够在生理条件下对半胱氨酸进行烷基化,具有较高的化学选择性.并且研究人员通过该探针成功地鉴定了姜黄素在HeLa细胞中的生物靶点,证明了其可作为与IA-alkyne探针标记结果互补的新型蛋白质半胱氨酸标记探针.近年来,研究人员还开发出能够根据反应基团附近取代基的不同来调谐对蛋白质半胱氨酸的标记能力的探针.如Brent R. Martin教授课题组尝试在苯并噻唑上修饰不同的取代基来探究是否能改良其反应活性,合成了一系列苯或砜上的取代衍生物.结果发现苯环的吸电子基团能够使反应活性变强,而给电子基团则能够减弱活性.随后该课题组还利用两种脱硫生物素化的探针(BT-desthiobiotin和IA-desthiobiotin)进行了HeLa细胞的活细胞标记,质谱检测结果显示两者标记肽段仅有50%重叠,总共可标记约5000个独立的半胱氨酸肽段,且对于Cys也有很强的选择性[23 ] .Tokunaga等人利用双环丁烷(BCB)的桥头碳被亲核试剂进攻时会发生开环的性质,设计合成了多种BCB类化合物,并应用化学蛋白质组学技术对BCB类型探针的反应特异性进行了评估.同时还通过对BCB类探针反应性的调节发现反应性较强的BCB酰胺可以用于半胱氨酸的广谱标记,而较弱的BCB酰胺则适合进行共价抑制剂的开发[24 ] .近期还有课题组使用马来酰亚胺激活的巯基反应探针(NPM)来探究位点特异性半胱氨酸反应性从超过800多个蛋白质中获得了1500多个独特的半胱氨酸位点的相对定量结果(图 5 ),提出了一种在氧化应激反应中测定半胱氨酸反应性的方法[25 ] . ...
1
2015
... 与IA-alkyne相比,光笼式溴代甲基酮(CBK) [19 ] 和碘代甲基酮(CIK4) [20 ] 显示出较低的细胞毒性,并可通过对空间和时间的控制来分析活细胞中的半胱氨酸(图 5 ).CBK被用来监测A431细胞在表皮生长因子(the epidermal growth factor,EGF)刺激下释放活性氧时半胱氨酸反应性的变化.同时人们还开发了卤代乙酰胺亲电试剂的替代品,包括芳基卤化物如对氯硝基苯RB2 [21 ] ,和高价碘试剂如乙炔基苯并恶唑啉酮(JW-RF-010) (图 5 ) [22 ] .JW-RF-010在水中稳定,能够在生理条件下对半胱氨酸进行烷基化,具有较高的化学选择性.并且研究人员通过该探针成功地鉴定了姜黄素在HeLa细胞中的生物靶点,证明了其可作为与IA-alkyne探针标记结果互补的新型蛋白质半胱氨酸标记探针.近年来,研究人员还开发出能够根据反应基团附近取代基的不同来调谐对蛋白质半胱氨酸的标记能力的探针.如Brent R. Martin教授课题组尝试在苯并噻唑上修饰不同的取代基来探究是否能改良其反应活性,合成了一系列苯或砜上的取代衍生物.结果发现苯环的吸电子基团能够使反应活性变强,而给电子基团则能够减弱活性.随后该课题组还利用两种脱硫生物素化的探针(BT-desthiobiotin和IA-desthiobiotin)进行了HeLa细胞的活细胞标记,质谱检测结果显示两者标记肽段仅有50%重叠,总共可标记约5000个独立的半胱氨酸肽段,且对于Cys也有很强的选择性[23 ] .Tokunaga等人利用双环丁烷(BCB)的桥头碳被亲核试剂进攻时会发生开环的性质,设计合成了多种BCB类化合物,并应用化学蛋白质组学技术对BCB类型探针的反应特异性进行了评估.同时还通过对BCB类探针反应性的调节发现反应性较强的BCB酰胺可以用于半胱氨酸的广谱标记,而较弱的BCB酰胺则适合进行共价抑制剂的开发[24 ] .近期还有课题组使用马来酰亚胺激活的巯基反应探针(NPM)来探究位点特异性半胱氨酸反应性从超过800多个蛋白质中获得了1500多个独特的半胱氨酸位点的相对定量结果(图 5 ),提出了一种在氧化应激反应中测定半胱氨酸反应性的方法[25 ] . ...
1
2020
... 蛋白质翻译后修饰(protein post-translational modifications,PTMs)是指一些基团通过酶或体内化学反应的方式被共价引入到蛋白质氨基酸侧链或末端,它可以改变目标蛋白的物理化学性质,并导致结构变化、活性和蛋白间相互作用等,进一步促进了从基因组水平到蛋白质组复杂性的增加.因此,近些年科研人员开发了多种化学蛋白质组学的方法来对PTMs进行研究[26 –28 ] .蛋白质半胱氨酸上的翻译后修饰主要包括氧化还原依赖的修饰(redox dependent modification)、脂质修饰(lipidation)、脂质衍生亲电分子修饰(LDEs)、其他代谢产物修饰等.其中氧化还原依赖的修饰主要通过两种途径实现,一是活性氧(reactive oxygen species,ROS)、活性氮(reactive nitrogen species,RNS)、活性硫(reactive sulfur species,RSS)介导半胱氨酸发生多种可逆修饰,如次磺酸化、亚磺酸化、亚硝基化、硫巯化等;二是利用复杂多样的还原酶系统介导上述翻译后修饰的还原,进而实现对诸多生物学进程与信号通路的精细调控[29 ] .脂质修饰主要是在相关酶的催化下将脂质分子转移到蛋白质半胱氨酸上,如S -棕榈酰化和S -异戊二烯化等.LDEs等是细胞代谢和脂质过氧化的产物,具有很高的生物反应活性,能与蛋白质半胱氨酸发生迈克尔加成反应,从而改变蛋白质的功能,甚至损伤细胞机制,如4-羟基壬烯醛(4-hydroxy-2-nonenal,HNE)修饰.除上述三种翻译后修饰外,在细胞复杂的代谢过程中一些代谢产物也可能会与蛋白质巯基进行作用产生代谢产物修饰,比如衣康酸修饰、富马酸修饰等.为了对这些种类丰富、形式多样的蛋白质半胱氨酸翻译后修饰进行研究,一系列用于组学鉴定、机制表征以及功能探究的定量化学蛋白质组技术相继被开发出来.下面分别介绍针对蛋白质半胱氨酸翻译后修饰的生物素置换、竞争标记、直接标记等不同方式的ABPP方法. ...
1
2021
... 蛋白质翻译后修饰(protein post-translational modifications,PTMs)是指一些基团通过酶或体内化学反应的方式被共价引入到蛋白质氨基酸侧链或末端,它可以改变目标蛋白的物理化学性质,并导致结构变化、活性和蛋白间相互作用等,进一步促进了从基因组水平到蛋白质组复杂性的增加.因此,近些年科研人员开发了多种化学蛋白质组学的方法来对PTMs进行研究[26 –28 ] .蛋白质半胱氨酸上的翻译后修饰主要包括氧化还原依赖的修饰(redox dependent modification)、脂质修饰(lipidation)、脂质衍生亲电分子修饰(LDEs)、其他代谢产物修饰等.其中氧化还原依赖的修饰主要通过两种途径实现,一是活性氧(reactive oxygen species,ROS)、活性氮(reactive nitrogen species,RNS)、活性硫(reactive sulfur species,RSS)介导半胱氨酸发生多种可逆修饰,如次磺酸化、亚磺酸化、亚硝基化、硫巯化等;二是利用复杂多样的还原酶系统介导上述翻译后修饰的还原,进而实现对诸多生物学进程与信号通路的精细调控[29 ] .脂质修饰主要是在相关酶的催化下将脂质分子转移到蛋白质半胱氨酸上,如S -棕榈酰化和S -异戊二烯化等.LDEs等是细胞代谢和脂质过氧化的产物,具有很高的生物反应活性,能与蛋白质半胱氨酸发生迈克尔加成反应,从而改变蛋白质的功能,甚至损伤细胞机制,如4-羟基壬烯醛(4-hydroxy-2-nonenal,HNE)修饰.除上述三种翻译后修饰外,在细胞复杂的代谢过程中一些代谢产物也可能会与蛋白质巯基进行作用产生代谢产物修饰,比如衣康酸修饰、富马酸修饰等.为了对这些种类丰富、形式多样的蛋白质半胱氨酸翻译后修饰进行研究,一系列用于组学鉴定、机制表征以及功能探究的定量化学蛋白质组技术相继被开发出来.下面分别介绍针对蛋白质半胱氨酸翻译后修饰的生物素置换、竞争标记、直接标记等不同方式的ABPP方法. ...
1
2001
... 蛋白质组学领域以生物素置换法(Biotin-Switch Assay,BSA)对蛋白质半胱氨酸翻译后修饰进行检测的应用较为广泛(图 6a ).其工作流程一般是通过烷基化试剂如甲基硫代磺酸甲酯(S -Methyl Methanethiosulfonate,MMTS)封闭蛋白质中的游离半胱氨酸,再用选择性试剂(如抗坏血酸)还原半胱氨酸翻译后修饰基团产生新的半胱氨酸,然后用生物素化试剂如Pyridyldisulfide-biotin (Biotin-HPDP)标记新产生的半胱氨酸,之后将利用链霉亲和素-生物素亲和纯化蛋白质,最后胰酶消化并进行质谱分析,得到修饰蛋白和位点信息.如Snyder, S. H.课题组在检测半胱氨酸亚硝基化修饰时,先通过MMTS封闭游离半胱氨酸,之后用抗坏血酸还原亚硝基化半胱氨酸,使其还原后,将新形成的半胱氨酸与Biotin-HPDP反应,再检测出发生亚硝基化修饰的蛋白质[30 ] .再如,硫化氢(H2 S)作为信号分子气体递质,在心血管和神经系统中发挥着重要的调节作用,蛋白质半胱氨酸的过硫化修饰是将H2 S信号转化为生物反应的机制.Carroll, K. S.报道的检测半胱氨酸过硫化修饰的研究中,蛋白质首先被MMTS烷基化,以封闭游离半胱氨酸,同时保留过硫化物.接着用Biotin-HPDP使过硫化物发生烷基化反应并形成蛋白质-生物素复合物以检测过硫化修饰[31 ] .但是这类方法往往操作繁琐,受多步反应的影响,富集效率较低;此外,内源性生物素化蛋白等可能会带来背景干扰,而且富集材料的性质也会影响富集效果. ...
1
2013
... 蛋白质组学领域以生物素置换法(Biotin-Switch Assay,BSA)对蛋白质半胱氨酸翻译后修饰进行检测的应用较为广泛(图 6a ).其工作流程一般是通过烷基化试剂如甲基硫代磺酸甲酯(S -Methyl Methanethiosulfonate,MMTS)封闭蛋白质中的游离半胱氨酸,再用选择性试剂(如抗坏血酸)还原半胱氨酸翻译后修饰基团产生新的半胱氨酸,然后用生物素化试剂如Pyridyldisulfide-biotin (Biotin-HPDP)标记新产生的半胱氨酸,之后将利用链霉亲和素-生物素亲和纯化蛋白质,最后胰酶消化并进行质谱分析,得到修饰蛋白和位点信息.如Snyder, S. H.课题组在检测半胱氨酸亚硝基化修饰时,先通过MMTS封闭游离半胱氨酸,之后用抗坏血酸还原亚硝基化半胱氨酸,使其还原后,将新形成的半胱氨酸与Biotin-HPDP反应,再检测出发生亚硝基化修饰的蛋白质[30 ] .再如,硫化氢(H2 S)作为信号分子气体递质,在心血管和神经系统中发挥着重要的调节作用,蛋白质半胱氨酸的过硫化修饰是将H2 S信号转化为生物反应的机制.Carroll, K. S.报道的检测半胱氨酸过硫化修饰的研究中,蛋白质首先被MMTS烷基化,以封闭游离半胱氨酸,同时保留过硫化物.接着用Biotin-HPDP使过硫化物发生烷基化反应并形成蛋白质-生物素复合物以检测过硫化修饰[31 ] .但是这类方法往往操作繁琐,受多步反应的影响,富集效率较低;此外,内源性生物素化蛋白等可能会带来背景干扰,而且富集材料的性质也会影响富集效果. ...
1
2019
... 蛋白质半胱氨酸发生翻译后修饰后不会再被标记半胱氨酸的化学探针所标记,利用这种特性,可通过与化学探针“竞争”的方式,来间接反映特定蛋白质半胱氨酸位点上的修饰情况(图 6b ).最为经典的竞争标记方式是之前所介绍的竞争性isoTOP-ABPP策略.例如,富马酸是一种与遗传性平滑肌瘤病和肾细胞癌(hereditary leiomyomatosis and renal cell carcinoma,HLRCC)高度相关的肿瘤代谢产物,它可以通过迈克尔加成与蛋白质中的半胱氨酸共价反应.Meier, J. L课题组在富马酸水合酶(fumarate hydratase,FH)突变的细胞模型中采用IA-alkyne竞争性isoTOP-ABPP方法,发现了对FH突变敏感的半胱氨酸[32 ] .衣康酸被认为是一种参与病原体-巨噬细胞界面的抗炎代谢产物.由于衣康酸弱的亲电性,它可以修饰Kelch-like ECH-associated protein 1 (KEAP1)上的半胱氨酸和谷胱甘肽,从而发挥抗炎作用.但是,人们还尚未对巨噬细胞中衣康酸修饰的底物进行系统分析,这在很大程度上阻碍了对其在免疫反应中作用的理解.王初课题组和陈兴课题组共同开发了一种特定的半胱氨酸反应性探针3, 4, 6-O-Ac3ManNAz (1-OH-Az),并通过竞争性的isoTOP-ABPP策略提供了其蛋白质组反应性的整体描述[33 ] . ...
1
2010
... 次磺酸(RSOH)是氧化应激的重要生物标志物[34 –36 ] ,它是半胱氨酸被过氧化氢氧化为亚磺酸、磺酸反应过程的中间体.目前用于蛋白质半胱氨酸的次磺酸化修饰检测的探针有4-chloro-7-nitrobenzo-2-oxa-1, 3-diazole (NBD-Cl)、环炔、二甲酮和降冰片烯等.Daniel C. Liebler课题组使用以双甲酮为反应基团的ABPP探针1 (图 7a ),选择性标记了细胞中约1000个发生次磺酸化修饰的蛋白质[37 ] .受双甲酮启示,Carroll等人对各种以碳为中心的双甲酮亲核试剂进行了广泛的研究,不断提高它们与RSOH的反应速率,设计的五个化学探针(DYn-2,TD,PYD,PRD,BTD)共在761种蛋白质上发现了1283个―SOH位点[38 ] .Justin M. Chalker等人设计的降冰片烯衍生物探针2 (图 7a )一端带有RSOH特异性响应的烯基基团,另一端带有可进行点击反应的炔基,用于探究蛋白质和活细胞中RSOH.与传统的二甲酮试剂相比,该探针显示出不同的反应活性和优越的化学选择性,利用该探针发现的148个新―SOH蛋白促进了对于氧化还原信号和与氧化应激相关的疾病的研究与理解[39 , 40 ] .另外,S. Bruce King课题组提出的环炔烃可以与RSOH快速反应生成烯基亚砜加合物,环炔烃探针3 (图 7a )利用生物素进行免疫蛋白印迹验证与RSOH的特异性响应,有助于发现未知的RSOH位点及其母蛋白[41 ] . ...
1
2021
... 次磺酸(RSOH)是氧化应激的重要生物标志物[34 –36 ] ,它是半胱氨酸被过氧化氢氧化为亚磺酸、磺酸反应过程的中间体.目前用于蛋白质半胱氨酸的次磺酸化修饰检测的探针有4-chloro-7-nitrobenzo-2-oxa-1, 3-diazole (NBD-Cl)、环炔、二甲酮和降冰片烯等.Daniel C. Liebler课题组使用以双甲酮为反应基团的ABPP探针1 (图 7a ),选择性标记了细胞中约1000个发生次磺酸化修饰的蛋白质[37 ] .受双甲酮启示,Carroll等人对各种以碳为中心的双甲酮亲核试剂进行了广泛的研究,不断提高它们与RSOH的反应速率,设计的五个化学探针(DYn-2,TD,PYD,PRD,BTD)共在761种蛋白质上发现了1283个―SOH位点[38 ] .Justin M. Chalker等人设计的降冰片烯衍生物探针2 (图 7a )一端带有RSOH特异性响应的烯基基团,另一端带有可进行点击反应的炔基,用于探究蛋白质和活细胞中RSOH.与传统的二甲酮试剂相比,该探针显示出不同的反应活性和优越的化学选择性,利用该探针发现的148个新―SOH蛋白促进了对于氧化还原信号和与氧化应激相关的疾病的研究与理解[39 , 40 ] .另外,S. Bruce King课题组提出的环炔烃可以与RSOH快速反应生成烯基亚砜加合物,环炔烃探针3 (图 7a )利用生物素进行免疫蛋白印迹验证与RSOH的特异性响应,有助于发现未知的RSOH位点及其母蛋白[41 ] . ...
1
2014
... 次磺酸(RSOH)是氧化应激的重要生物标志物[34 –36 ] ,它是半胱氨酸被过氧化氢氧化为亚磺酸、磺酸反应过程的中间体.目前用于蛋白质半胱氨酸的次磺酸化修饰检测的探针有4-chloro-7-nitrobenzo-2-oxa-1, 3-diazole (NBD-Cl)、环炔、二甲酮和降冰片烯等.Daniel C. Liebler课题组使用以双甲酮为反应基团的ABPP探针1 (图 7a ),选择性标记了细胞中约1000个发生次磺酸化修饰的蛋白质[37 ] .受双甲酮启示,Carroll等人对各种以碳为中心的双甲酮亲核试剂进行了广泛的研究,不断提高它们与RSOH的反应速率,设计的五个化学探针(DYn-2,TD,PYD,PRD,BTD)共在761种蛋白质上发现了1283个―SOH位点[38 ] .Justin M. Chalker等人设计的降冰片烯衍生物探针2 (图 7a )一端带有RSOH特异性响应的烯基基团,另一端带有可进行点击反应的炔基,用于探究蛋白质和活细胞中RSOH.与传统的二甲酮试剂相比,该探针显示出不同的反应活性和优越的化学选择性,利用该探针发现的148个新―SOH蛋白促进了对于氧化还原信号和与氧化应激相关的疾病的研究与理解[39 , 40 ] .另外,S. Bruce King课题组提出的环炔烃可以与RSOH快速反应生成烯基亚砜加合物,环炔烃探针3 (图 7a )利用生物素进行免疫蛋白印迹验证与RSOH的特异性响应,有助于发现未知的RSOH位点及其母蛋白[41 ] . ...
1
2017
... 次磺酸(RSOH)是氧化应激的重要生物标志物[34 –36 ] ,它是半胱氨酸被过氧化氢氧化为亚磺酸、磺酸反应过程的中间体.目前用于蛋白质半胱氨酸的次磺酸化修饰检测的探针有4-chloro-7-nitrobenzo-2-oxa-1, 3-diazole (NBD-Cl)、环炔、二甲酮和降冰片烯等.Daniel C. Liebler课题组使用以双甲酮为反应基团的ABPP探针1 (图 7a ),选择性标记了细胞中约1000个发生次磺酸化修饰的蛋白质[37 ] .受双甲酮启示,Carroll等人对各种以碳为中心的双甲酮亲核试剂进行了广泛的研究,不断提高它们与RSOH的反应速率,设计的五个化学探针(DYn-2,TD,PYD,PRD,BTD)共在761种蛋白质上发现了1283个―SOH位点[38 ] .Justin M. Chalker等人设计的降冰片烯衍生物探针2 (图 7a )一端带有RSOH特异性响应的烯基基团,另一端带有可进行点击反应的炔基,用于探究蛋白质和活细胞中RSOH.与传统的二甲酮试剂相比,该探针显示出不同的反应活性和优越的化学选择性,利用该探针发现的148个新―SOH蛋白促进了对于氧化还原信号和与氧化应激相关的疾病的研究与理解[39 , 40 ] .另外,S. Bruce King课题组提出的环炔烃可以与RSOH快速反应生成烯基亚砜加合物,环炔烃探针3 (图 7a )利用生物素进行免疫蛋白印迹验证与RSOH的特异性响应,有助于发现未知的RSOH位点及其母蛋白[41 ] . ...
1
2019
... 次磺酸(RSOH)是氧化应激的重要生物标志物[34 –36 ] ,它是半胱氨酸被过氧化氢氧化为亚磺酸、磺酸反应过程的中间体.目前用于蛋白质半胱氨酸的次磺酸化修饰检测的探针有4-chloro-7-nitrobenzo-2-oxa-1, 3-diazole (NBD-Cl)、环炔、二甲酮和降冰片烯等.Daniel C. Liebler课题组使用以双甲酮为反应基团的ABPP探针1 (图 7a ),选择性标记了细胞中约1000个发生次磺酸化修饰的蛋白质[37 ] .受双甲酮启示,Carroll等人对各种以碳为中心的双甲酮亲核试剂进行了广泛的研究,不断提高它们与RSOH的反应速率,设计的五个化学探针(DYn-2,TD,PYD,PRD,BTD)共在761种蛋白质上发现了1283个―SOH位点[38 ] .Justin M. Chalker等人设计的降冰片烯衍生物探针2 (图 7a )一端带有RSOH特异性响应的烯基基团,另一端带有可进行点击反应的炔基,用于探究蛋白质和活细胞中RSOH.与传统的二甲酮试剂相比,该探针显示出不同的反应活性和优越的化学选择性,利用该探针发现的148个新―SOH蛋白促进了对于氧化还原信号和与氧化应激相关的疾病的研究与理解[39 , 40 ] .另外,S. Bruce King课题组提出的环炔烃可以与RSOH快速反应生成烯基亚砜加合物,环炔烃探针3 (图 7a )利用生物素进行免疫蛋白印迹验证与RSOH的特异性响应,有助于发现未知的RSOH位点及其母蛋白[41 ] . ...
1
2014
... 次磺酸(RSOH)是氧化应激的重要生物标志物[34 –36 ] ,它是半胱氨酸被过氧化氢氧化为亚磺酸、磺酸反应过程的中间体.目前用于蛋白质半胱氨酸的次磺酸化修饰检测的探针有4-chloro-7-nitrobenzo-2-oxa-1, 3-diazole (NBD-Cl)、环炔、二甲酮和降冰片烯等.Daniel C. Liebler课题组使用以双甲酮为反应基团的ABPP探针1 (图 7a ),选择性标记了细胞中约1000个发生次磺酸化修饰的蛋白质[37 ] .受双甲酮启示,Carroll等人对各种以碳为中心的双甲酮亲核试剂进行了广泛的研究,不断提高它们与RSOH的反应速率,设计的五个化学探针(DYn-2,TD,PYD,PRD,BTD)共在761种蛋白质上发现了1283个―SOH位点[38 ] .Justin M. Chalker等人设计的降冰片烯衍生物探针2 (图 7a )一端带有RSOH特异性响应的烯基基团,另一端带有可进行点击反应的炔基,用于探究蛋白质和活细胞中RSOH.与传统的二甲酮试剂相比,该探针显示出不同的反应活性和优越的化学选择性,利用该探针发现的148个新―SOH蛋白促进了对于氧化还原信号和与氧化应激相关的疾病的研究与理解[39 , 40 ] .另外,S. Bruce King课题组提出的环炔烃可以与RSOH快速反应生成烯基亚砜加合物,环炔烃探针3 (图 7a )利用生物素进行免疫蛋白印迹验证与RSOH的特异性响应,有助于发现未知的RSOH位点及其母蛋白[41 ] . ...
1
2010
... 蛋白质半胱氨酸的亚磺酸化修饰(―SO2 H)是活性氧进一步氧化RSOH为半胱氨酸亚磺酸(RSO2 H)的产物,是由生理信号和氧化还原应激诱导的蛋白质天然发生的翻译后修饰[42 , 43 ] .Carroll团队设计了两种基于与RSO2 H形成稳定化合物的探针:一种是名为NO-Bio的亚硝基苯甲酸酯,另一种是名为Diazenes的含电子缺陷的二嗪探针4 (图 7b ) [44 –46 ] .后者具有优异的灵敏度和与质谱的兼容性,便于蛋白质RSO2 H的位点定量分析.另外,基于RSO2 H的亲核性,Gregory R. J. Thatcher课题组根据亚磺酸与亚硝酸作用可以形成稳定的硫代磺酸盐设计了含亚硝酸的探针5 (图 7b )和含亚磺酸的探针6 (图 7c )来分别研究蛋白质半胱氨酸的亚磺酸化和亚硝基化[47 ] . ...
1
2018
... 蛋白质半胱氨酸的亚磺酸化修饰(―SO2 H)是活性氧进一步氧化RSOH为半胱氨酸亚磺酸(RSO2 H)的产物,是由生理信号和氧化还原应激诱导的蛋白质天然发生的翻译后修饰[42 , 43 ] .Carroll团队设计了两种基于与RSO2 H形成稳定化合物的探针:一种是名为NO-Bio的亚硝基苯甲酸酯,另一种是名为Diazenes的含电子缺陷的二嗪探针4 (图 7b ) [44 –46 ] .后者具有优异的灵敏度和与质谱的兼容性,便于蛋白质RSO2 H的位点定量分析.另外,基于RSO2 H的亲核性,Gregory R. J. Thatcher课题组根据亚磺酸与亚硝酸作用可以形成稳定的硫代磺酸盐设计了含亚硝酸的探针5 (图 7b )和含亚磺酸的探针6 (图 7c )来分别研究蛋白质半胱氨酸的亚磺酸化和亚硝基化[47 ] . ...
1
2012
... 蛋白质半胱氨酸的亚磺酸化修饰(―SO2 H)是活性氧进一步氧化RSOH为半胱氨酸亚磺酸(RSO2 H)的产物,是由生理信号和氧化还原应激诱导的蛋白质天然发生的翻译后修饰[42 , 43 ] .Carroll团队设计了两种基于与RSO2 H形成稳定化合物的探针:一种是名为NO-Bio的亚硝基苯甲酸酯,另一种是名为Diazenes的含电子缺陷的二嗪探针4 (图 7b ) [44 –46 ] .后者具有优异的灵敏度和与质谱的兼容性,便于蛋白质RSO2 H的位点定量分析.另外,基于RSO2 H的亲核性,Gregory R. J. Thatcher课题组根据亚磺酸与亚硝酸作用可以形成稳定的硫代磺酸盐设计了含亚硝酸的探针5 (图 7b )和含亚磺酸的探针6 (图 7c )来分别研究蛋白质半胱氨酸的亚磺酸化和亚硝基化[47 ] . ...
1
2018
... 蛋白质半胱氨酸的亚磺酸化修饰(―SO2 H)是活性氧进一步氧化RSOH为半胱氨酸亚磺酸(RSO2 H)的产物,是由生理信号和氧化还原应激诱导的蛋白质天然发生的翻译后修饰[42 , 43 ] .Carroll团队设计了两种基于与RSO2 H形成稳定化合物的探针:一种是名为NO-Bio的亚硝基苯甲酸酯,另一种是名为Diazenes的含电子缺陷的二嗪探针4 (图 7b ) [44 –46 ] .后者具有优异的灵敏度和与质谱的兼容性,便于蛋白质RSO2 H的位点定量分析.另外,基于RSO2 H的亲核性,Gregory R. J. Thatcher课题组根据亚磺酸与亚硝酸作用可以形成稳定的硫代磺酸盐设计了含亚硝酸的探针5 (图 7b )和含亚磺酸的探针6 (图 7c )来分别研究蛋白质半胱氨酸的亚磺酸化和亚硝基化[47 ] . ...
1
2016
... 蛋白质半胱氨酸的亚磺酸化修饰(―SO2 H)是活性氧进一步氧化RSOH为半胱氨酸亚磺酸(RSO2 H)的产物,是由生理信号和氧化还原应激诱导的蛋白质天然发生的翻译后修饰[42 , 43 ] .Carroll团队设计了两种基于与RSO2 H形成稳定化合物的探针:一种是名为NO-Bio的亚硝基苯甲酸酯,另一种是名为Diazenes的含电子缺陷的二嗪探针4 (图 7b ) [44 –46 ] .后者具有优异的灵敏度和与质谱的兼容性,便于蛋白质RSO2 H的位点定量分析.另外,基于RSO2 H的亲核性,Gregory R. J. Thatcher课题组根据亚磺酸与亚硝酸作用可以形成稳定的硫代磺酸盐设计了含亚硝酸的探针5 (图 7b )和含亚磺酸的探针6 (图 7c )来分别研究蛋白质半胱氨酸的亚磺酸化和亚硝基化[47 ] . ...
1
2003
... 蛋白质半胱氨酸的亚硝基化(―SNO)是一氧化氮作用于半胱氨酸残基形成亚硝酸(RSNO)的过程,是介导一氧化氮生物活性的最重要的信号通路[48 ] .Tannenbaum等人将还原连接技术与生物素转换策略相结合,利用一种基于磷化氢的ABPP探针7 (图 7c )直接检测RSNO [49 ] . ...
1
2006
... 蛋白质半胱氨酸的亚硝基化(―SNO)是一氧化氮作用于半胱氨酸残基形成亚硝酸(RSNO)的过程,是介导一氧化氮生物活性的最重要的信号通路[48 ] .Tannenbaum等人将还原连接技术与生物素转换策略相结合,利用一种基于磷化氢的ABPP探针7 (图 7c )直接检测RSNO [49 ] . ...
1
2009
... 除了上述所说的三种标记方式,针对脂质修饰、脂质衍生亲电分子修饰和其他代谢产物修饰等代谢标记,研究人员在原本的代谢物上引入正交基团合成相应的探针来对这些蛋白质半胱氨酸的翻译后修饰进行研究.例如,蛋白质半胱氨酸的S -棕榈酰化修饰(S -Palmitoylation),是16-碳饱和脂肪酸在S -酰基转移酶的作用下通过硫酯键共价修饰到蛋白质半胱氨酸形成的动态可逆的脂质修饰,可增加蛋白质疏水性,调控蛋白质的结构功能等,在细胞信号转导等方面发挥重要作用.Rami N. Hannoush课题组利用炔基棕榈酸类似物代谢标记的方法,实现高通量的S -palmitoylation修饰蛋白质组的定性和定量研究[50 ] .蛋白质半胱氨酸的4-羟基壬烯酸修饰(S -HNE),由HNE和半胱氨酸发生迈克尔加成产生,能够改变蛋白质的功能,甚至破坏细胞机制.Yang等利用一种含炔基HNE的类似物,利用轻重同位素选择性标记HNE修饰的蛋白质,从RKO细胞中鉴定出386个含炔基HNE类似物的半胱氨酸的蛋白质[51 ] .另外,蛋白质异戊二烯化(S -Prenylation)也是一种半胱氨酸翻译后修饰的脂质修饰类型,在细胞定位、信号传导等方面发挥重要作用.Guillaume Charron等设计了炔基-法尼醇这类ABPP探针实现异戊二烯蛋白质组的分析[52 ] .在用竞争标记方法间接鉴定了衣康酸修饰的半胱氨酸位点后,王初课题组又开发了带有炔基的新型衣康酸修饰探针工具,结合定量化学蛋白质组学技术,首次实现了炎症巨噬细胞中衣康酸修饰半胱氨酸位点的大规模直接鉴定,并且进一步揭示了衣康酸对细胞程序性坏死过程的调节作用[53 ] . ...
1
2015
... 除了上述所说的三种标记方式,针对脂质修饰、脂质衍生亲电分子修饰和其他代谢产物修饰等代谢标记,研究人员在原本的代谢物上引入正交基团合成相应的探针来对这些蛋白质半胱氨酸的翻译后修饰进行研究.例如,蛋白质半胱氨酸的S -棕榈酰化修饰(S -Palmitoylation),是16-碳饱和脂肪酸在S -酰基转移酶的作用下通过硫酯键共价修饰到蛋白质半胱氨酸形成的动态可逆的脂质修饰,可增加蛋白质疏水性,调控蛋白质的结构功能等,在细胞信号转导等方面发挥重要作用.Rami N. Hannoush课题组利用炔基棕榈酸类似物代谢标记的方法,实现高通量的S -palmitoylation修饰蛋白质组的定性和定量研究[50 ] .蛋白质半胱氨酸的4-羟基壬烯酸修饰(S -HNE),由HNE和半胱氨酸发生迈克尔加成产生,能够改变蛋白质的功能,甚至破坏细胞机制.Yang等利用一种含炔基HNE的类似物,利用轻重同位素选择性标记HNE修饰的蛋白质,从RKO细胞中鉴定出386个含炔基HNE类似物的半胱氨酸的蛋白质[51 ] .另外,蛋白质异戊二烯化(S -Prenylation)也是一种半胱氨酸翻译后修饰的脂质修饰类型,在细胞定位、信号传导等方面发挥重要作用.Guillaume Charron等设计了炔基-法尼醇这类ABPP探针实现异戊二烯蛋白质组的分析[52 ] .在用竞争标记方法间接鉴定了衣康酸修饰的半胱氨酸位点后,王初课题组又开发了带有炔基的新型衣康酸修饰探针工具,结合定量化学蛋白质组学技术,首次实现了炎症巨噬细胞中衣康酸修饰半胱氨酸位点的大规模直接鉴定,并且进一步揭示了衣康酸对细胞程序性坏死过程的调节作用[53 ] . ...
1
2013
... 除了上述所说的三种标记方式,针对脂质修饰、脂质衍生亲电分子修饰和其他代谢产物修饰等代谢标记,研究人员在原本的代谢物上引入正交基团合成相应的探针来对这些蛋白质半胱氨酸的翻译后修饰进行研究.例如,蛋白质半胱氨酸的S -棕榈酰化修饰(S -Palmitoylation),是16-碳饱和脂肪酸在S -酰基转移酶的作用下通过硫酯键共价修饰到蛋白质半胱氨酸形成的动态可逆的脂质修饰,可增加蛋白质疏水性,调控蛋白质的结构功能等,在细胞信号转导等方面发挥重要作用.Rami N. Hannoush课题组利用炔基棕榈酸类似物代谢标记的方法,实现高通量的S -palmitoylation修饰蛋白质组的定性和定量研究[50 ] .蛋白质半胱氨酸的4-羟基壬烯酸修饰(S -HNE),由HNE和半胱氨酸发生迈克尔加成产生,能够改变蛋白质的功能,甚至破坏细胞机制.Yang等利用一种含炔基HNE的类似物,利用轻重同位素选择性标记HNE修饰的蛋白质,从RKO细胞中鉴定出386个含炔基HNE类似物的半胱氨酸的蛋白质[51 ] .另外,蛋白质异戊二烯化(S -Prenylation)也是一种半胱氨酸翻译后修饰的脂质修饰类型,在细胞定位、信号传导等方面发挥重要作用.Guillaume Charron等设计了炔基-法尼醇这类ABPP探针实现异戊二烯蛋白质组的分析[52 ] .在用竞争标记方法间接鉴定了衣康酸修饰的半胱氨酸位点后,王初课题组又开发了带有炔基的新型衣康酸修饰探针工具,结合定量化学蛋白质组学技术,首次实现了炎症巨噬细胞中衣康酸修饰半胱氨酸位点的大规模直接鉴定,并且进一步揭示了衣康酸对细胞程序性坏死过程的调节作用[53 ] . ...
1
2016
... 除了上述所说的三种标记方式,针对脂质修饰、脂质衍生亲电分子修饰和其他代谢产物修饰等代谢标记,研究人员在原本的代谢物上引入正交基团合成相应的探针来对这些蛋白质半胱氨酸的翻译后修饰进行研究.例如,蛋白质半胱氨酸的S -棕榈酰化修饰(S -Palmitoylation),是16-碳饱和脂肪酸在S -酰基转移酶的作用下通过硫酯键共价修饰到蛋白质半胱氨酸形成的动态可逆的脂质修饰,可增加蛋白质疏水性,调控蛋白质的结构功能等,在细胞信号转导等方面发挥重要作用.Rami N. Hannoush课题组利用炔基棕榈酸类似物代谢标记的方法,实现高通量的S -palmitoylation修饰蛋白质组的定性和定量研究[50 ] .蛋白质半胱氨酸的4-羟基壬烯酸修饰(S -HNE),由HNE和半胱氨酸发生迈克尔加成产生,能够改变蛋白质的功能,甚至破坏细胞机制.Yang等利用一种含炔基HNE的类似物,利用轻重同位素选择性标记HNE修饰的蛋白质,从RKO细胞中鉴定出386个含炔基HNE类似物的半胱氨酸的蛋白质[51 ] .另外,蛋白质异戊二烯化(S -Prenylation)也是一种半胱氨酸翻译后修饰的脂质修饰类型,在细胞定位、信号传导等方面发挥重要作用.Guillaume Charron等设计了炔基-法尼醇这类ABPP探针实现异戊二烯蛋白质组的分析[52 ] .在用竞争标记方法间接鉴定了衣康酸修饰的半胱氨酸位点后,王初课题组又开发了带有炔基的新型衣康酸修饰探针工具,结合定量化学蛋白质组学技术,首次实现了炎症巨噬细胞中衣康酸修饰半胱氨酸位点的大规模直接鉴定,并且进一步揭示了衣康酸对细胞程序性坏死过程的调节作用[53 ] . ...