




1 背景介绍
中心法则提出,遗传信息从DNA转录为RNA,再从RNA翻译为具有不同功能的蛋白质。表观遗传学指出,基因表达的每个环节都是被严密调控的,相同的核苷酸序列,可表达出可遗传的不同遗传信息,其中以DNA甲基化和组蛋白翻译后修饰为代表。如DNA甲基化修饰5-甲基胞嘧啶(5-methylcytosine,5mC)[1, 2],它存在于基因的启动子区时,会抑制基因的转录,进一步影响细胞的分化生长。DNA上的5-羟甲基胞嘧啶(5-hydroxymethylcytosine,5hmC)有促进基因表达的功能,它在白血病细胞中含量升高[3, 4]。组蛋白也可以通过甲基化、乙酰化、磷酸化、泛素化等抑制或激活基因表达[5-7]。由于RNA结构的复杂、性质的不稳定及研究方法的限制等,人们一直忽略了RNA在表观遗传学中的重要作用,直到2011年发现首个RNA化学修饰N6-甲基腺嘌呤(N6-methyladenosine,m6A)的去甲基酶[8],才发现RNA的转录后修饰也是表观遗传学的重要环节[9]。
RNA上已鉴定出的100多种化学修饰中[10],m6A是真核生物mRNA上存在的最为保守、广泛的中间修饰(0.1%-0.4% m6A/A),相当于平均每条mRNA含有3-5个m6A [11-13]。自20世纪70年代被发现以来,它在病毒[14, 15]、哺乳动物细胞[13, 16-19]、果蝇[20]、植物[21, 22]以及酵母[23]中都陆续被鉴定出来。按RNA的种类分类,m6A还发现于tRNA[24]、rRNA[25]、小核RNA (small nuclear RNA,snRNA)[26]以及长非编码RNA (long non-coding RNA,lncRNA)中。由于m6A不会干扰碱基互补配对,在反转录时不会产生突变,致使其检测比较困难,长久以来研究比较缓慢。直到第一个RNA去甲基酶肥胖蛋白FTO (fat-mass and obesity associated protein)的发现,揭示m6A是动态可逆的,预示着具有调控基因表达的潜在功能[8]。自此开启了全新研究领域——RNA表观遗传学(亦称表观转录组学)。
mRNA上携带着编辑蛋白序列的密码子,m6A像密码子之上多出的旁注,要解析m6A所携带的信息,需要开发m6A的检测技术,发现和研究m6A甲基转移酶复合物(编码器)、去甲基酶(消码器)和结合蛋白(读码器)的功能。目前,人们已经在哺乳动物细胞中找到m6A甲基转移酶复合物的四个组分METTL3(methyltransferase like 3)[27]、METTL14(methyltransferase like 14)[28]、WTAP (wilms′ tumor1-associating protein)[29]和KIAA1429[30],两个去甲基酶FTO[8]和ALKBH5[31],和一系列结合蛋白,并发展了利用抗体富集的m6A高通量测序技术[32, 33]。在植物中,m6A同样被很早发现,1979年Kennedy和Lane[34]在小麦中发现了m6A,1980年Haugland和Cline[21]发现在燕麦胚芽鞘mRNA内部存在m6A,1981年Nichols和Welder[22]在玉米中发现m6A。但是m6A在植物中的研究还比较滞后,主要还停留在对m6A甲基转移酶的研究阶段[35-37]。
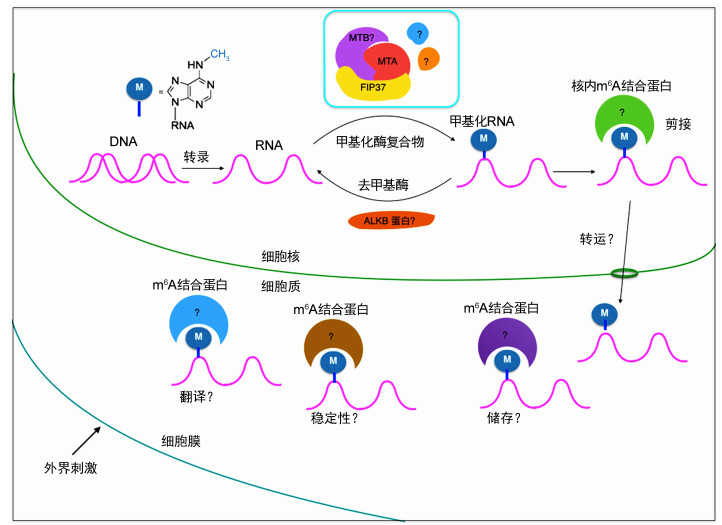
本文从m6A全转录组分布特征、m6A相关的甲基转移酶、去甲基酶及结合蛋白方面综述研究进展,通过对比其他物种中的研究结果来总结和预测m6A在植物的生长发育、应对外界刺激时的重要作用,阐述植物中的研究对于我们更加深刻地理解m6A功能的重要作用(图1)。
图1
2 m6A在转录组上的分布及检测技术
想要研究m6A的功能,首先要发展各种检测方法来确认它在RNA上的位置。由于m6A并不影响碱基互补配对原则,与正常的A一样与U配对,所以不能用正常测序或杂交的方法来检测,增加了对它检测的难度。
早期在RNA中鉴定m6A的方法采用同位素标记[13, 38, 39]、薄层色谱[40, 41]等方法,研究发现m6A出现在特定的序列GAC (70%)或AAC (30%)中[19, 42],并且这个保守序列是mRNA上m6A特有的,并没有出现在rRNA、tRNA和snRNA[24-26]中。之后m6A保守序列被进一步拓展成RRACH (R=G/A,G > A;H=A、C、U)[11, 32, 33, 40],后来的全转录组m6A高通量测序结果也证实了这一保守序列[31, 33]。m6A甲基转移酶和结合蛋白也都倾向于识别这个序列。但是由于这个保守序列的数量远大于m6A的数量,所以m6A的形成并不是m6A甲基转移酶简单地识别这个保守序列,应该存在更复杂的机理指导m6A的生成。
2012年,两个课题组[32, 33]分别同时开发了m6A的高通量测序技术(m6A-seq或MeRIP),极大推动了m6A的研究。该技术是将mRNA切成100个核苷酸(100 nt)左右的片段,采用m6A抗体亲和富集沉淀的方法,将富集出来的携带有m6A的RNA片段和对照(input)分别建库,可以得到分辨率在200 nt左右的全转录组m6A分布图。研究发现,在人和老鼠中,转录组m6A分布在mRNA和non-coding RNA (ncRNA),主要富集在3′非翻译区(3′UTR),其次是长的外显子(exon)上。m6A也在内含子(intron)上出现,说明m6A是在剪接前或剪接时被加到转录本上。从人类到老鼠细胞,从正常细胞到癌症细胞,到受外界各种刺激的细胞,测序结果显示很多m6A位点都是保守的,但也有很多m6A位点是物种特异、细胞系特异,以及细胞受到外界胁迫会出现特异的m6A位点。
酵母只在减数分裂期才会出现m6A,说明m6A对于酵母的减数分裂十分重要。2013年酵母中进行了分辨率更高(约50 nt)的m6A高通量测序[44]。并且用敲除IME4甲基化转移酶的酵母作为负对照,得到更加确信的结果。测序结果发现m6A在酵母中与人和老鼠模式相同,主要富集在3′UTR区。在酵母中计算甲基化的转录本得到的保守序列中心也是GAC。
拟南芥上的m6A与动物细胞中的含量水平相当[32, 35, 43]。2014年拟南芥Can-0和Hen-16两个品种转录组RNA上m6A的高通量测序[43]结果显示,与哺乳动物细胞相比,m6A在mRNA上的分布具有特异性,m6A不仅集中在终止密码子及3′UTR,还集中在起始密码子(start codon)附近,意味着m6A可能在植物中存在独特的功能。此外,研究发现在起始密码子附近含有m6A的基因很多都是叶绿体相关蛋白基因,并且一些光合作用相关的基因mRNA上也含有m6A,这说明m6A也与光合作用相关。在植物中m6A的保守序列与哺乳动物相同,都是RRACH (R=G/A,G > A;H=A、C、U)。拟南芥中位于3′UTR区的m6A倾向于与基因表达量负相关,而在5′端的m6A与基因表达正相关。植物上mRNA的起始密码子附近的m6A功能需要我们进一步探索。
2014年水稻中mRNA上m6A的测序也被报道[45]。研究也发现m6A不仅集中在翻译终止点附近,也集中在翻译起始位点。水稻的愈伤组织和叶片相比,m6A大部分的位点比较保守,但仍有相当一部分呈现组织特异性。
为了追求更高的分辨率,2014年开发了光交联辅助m6A测序技术(photo-crosslinking-assisted m6Asequencing strategy,PA-m6A-seq)[46],在细胞培养时掺加4-硫代尿苷(4-thiouridine,4SU),365 nm紫外光照下带有4SU的RNA可以与m6A抗体发生交联,从而在m6A位点附近引入突变,将m6A的位置定位到单碱基水平。但是该方法须引入4SU,目前只能在细胞中使用。
2015年发展了m6A碱基分辨率交联共沉淀技术(m6A individual-nucleotide-resolution cross-linkingand immunoprecipitation,miCLIP)[47],用254 nm波长紫外光诱导m6A抗体与RNA交联,逆转录时会产生转录停止或突变,从而确定m6A精确位点。但是这种方法抗体的依赖性高,不同质量的抗体会得到不同的效率。
m6A的测序方法虽然正在一步步完善,但是也要看到,m6A的单碱基分辨率高通量测序仍然面临很多挑战,这仍然将是m6A研究需要解决的一个关键问题。
3 植物中m6A的编码器
早在1988年Narayan和Rottman[12]就利用HeLa细胞核裂解液中包含的甲基化转移酶体外对腺嘌呤进行甲基化的实验。1994年人们分离出来与m6A甲基化相关的30、200和875 kDa复合物[48],1997年从200 kDa甲基化酶复合物中鉴定出70 kDa的第一个哺乳动物甲基化酶METTL3[27]。序列分析发现它与已知的酵母中的调节减数分裂和孢子形成的IME4基因是同源蛋白[49],并通过实验证实确为m6A甲基转移酶组分[23]。此外先后在多个物种中找到METTL3的同源蛋白,如拟南芥中的MTA[35],果蝇中的IME4[50],均发现m6A甲基化对生物体生长发育具有重要的调控功能。对METTL3家族进行进化分析[51]和实验[52]发现了m6A甲基转移酶复合物第二个活性组分,它是与METTL3不同家系但高度同源的METTL14基因。2008年拟南芥中发现MTA时,通过酵母双杂交发现它与FIP37有相互作用[35]。2014年证明FIP37在哺乳动物细胞中的同源蛋白WTAP[53]是m6A甲基化转移酶复合物中第三个组分。人们又通过WTAP发现了能与其相互作用的KIAA1429为第四个组分[30]。
在酵母中,甲基化转移酶复合物是MIS复合物,定位在核仁中[56],由Ime4(METTL3同源蛋白),Mum2(WTAP同源蛋白),Slz1(sporulation specific with a leucine zipper motif protein 1)和其他未知蛋白成分组成。Mum2、Slz1是酵母中跟减数分裂有关的两个蛋白,他们与Ime4都有相互作用。敲除Mum2会显著影响Ime4的甲基化能力,但敲除Slz1并没有直接影响Ime4的甲基化能力。哺乳动物和植物细胞内没有Slz1的同源蛋白,它们的甲基化转移酶主要定位在核小斑而不是核仁中。
植物中m6A相关的蛋白酶研究较少,只在拟南芥中研究了它的甲基化转移酶组分MTA (At4g10760,METTL3同源蛋白)和FIP37(At3g54170,WTAP同源蛋白)(图1)。拟南芥MTA最早被命名为EMB1706(Embryo-Defective1706),是在筛选胚胎发育损伤的基因时发现并命名。MTA主要分布在分裂组织中,特别是生殖器官,顶端分生组织及新生的根毛等,相应的m6A在这些组织中含量较高,花苞中含量最高。在拟南芥中敲除MTA会使种子停留在球形胚阶段不能继续发育[35]。在mta突变体中部分回补胚发育期的特定启动子ABI3启动的MTA,可以使mta突变体种子度过胚胎发育初期继续发育,而进入之后的成长阶段后不再表达MTA,使拟南芥植株的m6A水平下降。可以看到m6A水平的下降会导致拟南芥顶端优势的降低,花序节间长度变短,莲座叶变得更小但是更浓密。毛状体分叉数目增多,而毛状体分叉是植物核内复制的指示标,说明m6A可能与调控DNA的复制相关。
目前大家对MTB还知之甚少。对植物中其他m6A甲基化转移酶复合物中的成分的鉴定也将有助于对m6A功能的理解。
4 植物中m6A消码器
图2
5 植物中m6A读码器
敲除或过表达甲基化酶和去甲基化酶得到了m6A含量变化的各种表型,证明了m6A对于生物体生长发育的重要作用。但是要想知道m6A发挥作用的具体分子机理,最重要的是要弄清楚m6A的读码器是如何发挥作用的。
第一个证明的m6A的结合蛋白是人类基因YTHDF2[62],它是一个细胞质定位的蛋白。YTHDF2在细胞中有超过3000个含m6A的目标RNA,其中大多是mRNA,小部分为非编码RNA。YTHDF2对RNA的识别区域也呈现出一个保守的共有序列G (m6A) C。YHTDF2蛋白含有两个功能域,C端含YTH结构域直接结合m6A,N端可以使mRNA重新定位到P小体,促进其降解。
YTHDF1与YTHDF2不同,它的功能是促进mRNA的翻译[64]。YTHDF1也定位在细胞质中,与翻译起始因子EIF3互相作用促进翻译效率。YTHDF1表达量的降低,会使其底物mRNA与多聚核糖体的结合减弱,导致蛋白被翻译的效率降低。
图3
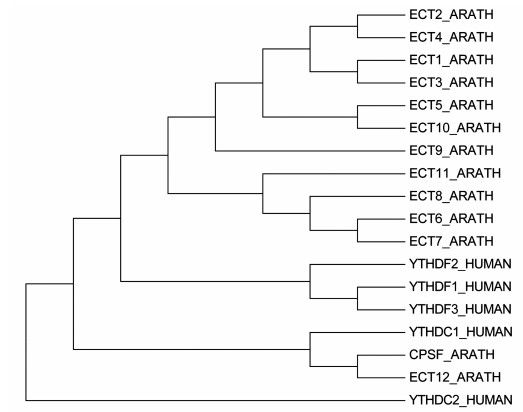
拟南芥中将YTH结构域命名为ECT (evolutionarily conserved C-terminal region ECT domain)结构域[72]。因为在研究拟南芥应对各种外界刺激时的一个关键蛋白CIPK1(Calcineurin B-Like-InteractingProtein Kinase1)时发现了有两个蛋白与其有特异的相互作用,并且含有一个保守的结构域就是ECT结构域。这两个蛋白分别为ECT1和ECT2。研究表明ECT1、ECT2通过与CIPK1相互作用,在拟南芥接受外界刺激时将钙离子信号传递到细胞核内,具有重要作用。但是,这其中m6A发挥的功能还没有研究。
另外一个与YTH结构域相关的拟南芥中的研究是CPSF30(30 kDa cleavage and polyadenylation specificity factor 30)[73],它是一个定位在细胞核中的蛋白,调控mRNA的3′端的剪接,通过水杨酸通路对拟南芥应对外界刺激具有重要作用。然而CPSF30并不包含YTH结构域,它与包含YTH结构域的70 kDa的CPSF30由同一个基因编辑,却是不同的剪接体。但是正常的拟南芥中不含YTH结构域的CPSF30这种剪接占到绝大部分。接下来,搞清在什么时刻含有YTH结构域的剪接体成为主要剪接体,以及它将发挥什么作用,是个重要的工作。
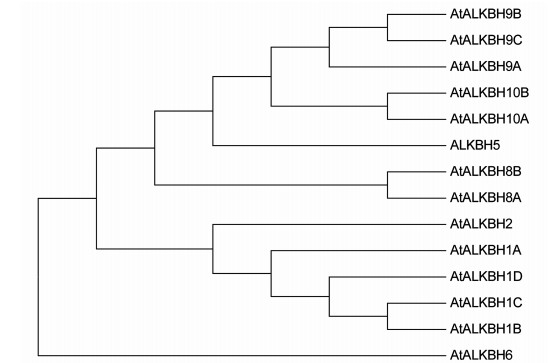
此外,植物中研究m6A相关结合蛋白与去甲基蛋白有同样的问题,就是它的同源蛋白比较多。这些同源蛋白是每个都有其特异的功能,还是存在功能的冗余,或者功能上的协调,这些都是研究者所面临的挑战。
6 总结与展望
目前,人们在细胞水平对m6A发挥RNA表观遗传学调控功能的研究已经取得了非常多的进展。
m6A调节细胞的分化。在老鼠胚胎干细胞(embryonic stem cell,ESCs)中敲除METTL3,会使细胞处于初始多能性状态,而不向活化多能性状态转化,从而抑制进一步分化。相反,在老鼠另一个更易分化的外胚层干细胞(mouse epiblast stem cells,mEpiSCs)细胞系中,敲除METTL3会导致细胞稳定性减弱,使细胞快速分化或者细胞死亡[74]。
m6A调节细胞的节律[75]。很多跟昼夜节律相关的基因上都含有m6A,通过敲除细胞中的甲基化酶METTL3,降低m6A的水平会导致真核细胞生物钟周期变长。
动物细胞系虽然是最理想的用来研究各种细胞通路机理的工具,但由于细胞群不能组成一个生物个体,所以不能显示出个体遇到各种刺激损伤时所显现的表型,从而不能更深入一步研究。植物个体如拟南芥将是最理想的用来研究m6A在生命体应对外界刺激时所发挥作用的机理的模式生物。它具有强大的基因敲除数据库,同时目前为止较为成熟的实验方法可以使我们观察各种m6A或m6A相关蛋白酶受干扰后出现的性状,从而更深刻地理解m6A发挥RNA表观遗传学调控对个体生长发育的影响。
此外植物体作为自养生物与异养的动物体区别很大。目前测序结果也证明m6A在植物和动物中存在的模式有很大不同,因而发挥功能的方式也有很大不同。m6A在不同模式的生命个体如病毒、动物、植物mRNA上都发挥着广泛的作用,从而说明它的重要性。这也是一个我们需要在植物体中研究m6A的重要原因。
参考文献


