
大学化学, 2022, 37(9): 2204087-0 doi: 10.3866/PKU.DXHX202204087

科普

DNA历险记——氧化损伤篇

关喆, 宋红杰, 刘睿,

Adventures of DNA: Oxidative Damage

Guan Zhe, Song Hongjie, Liu Rui,

通讯作者: 刘睿, Email: liur@scu.edu.cn

收稿日期: 2022-04-24   接受日期: 2022-06-4  

基金资助: 四川大学大学生创新训练计划项目.  20220311L
四川大学研究生教育教学改革研究项目.  GSSCU2021097
四川大学化学学院2021年度教育教学改革研究项目.  202101

Received: 2022-04-24   Accepted: 2022-06-4  

Abstract

DNA damage is a change in DNA structure caused by external or internal factors, including DNA alkylation, oxidation, mismatch, breakage. Although the DNA damage repair mechanism can repair damaged DNA to a certain extent, accumulated damage that is not repaired can seriously threaten genome stability and human life. Oxidative DNA damage is one of the most common types of damage, with 8-hydroxydeoxyguanosine as its biomarker. The quantitative detection of 8-hydroxydeoxyguanosine can reflect the degree of oxidative DNA damage, which is very important for the early diagnosis and treatment of diseases. In this paper, we introduce the production process, repair mechanism, and detection methods for 8-hydroxydeoxyguanosine.

Keywords: DNA damage and repair ; Oxidative DNA damage ; 8-hydroxydeoxyguanosine ; Production process ; Repair mechanism ; Detection methods

PDF (756KB) 元数据 多维度评价 相关文章 导出 EndNote| Ris| Bibtex  收藏本文

本文引用格式

关喆, 宋红杰, 刘睿. DNA历险记——氧化损伤篇. 大学化学[J], 2022, 37(9): 2204087-0 doi:10.3866/PKU.DXHX202204087

Guan Zhe. Adventures of DNA: Oxidative Damage. University Chemistry[J], 2022, 37(9): 2204087-0 doi:10.3866/PKU.DXHX202204087

DNA是由脱氧核糖核苷酸为单体组成的生物大分子,而脱氧核糖核苷酸则由脱氧核糖、磷酸和碱基构成。其中正常的碱基有4种,分别为腺嘌呤(A)、鸟嘌呤(G)、胸腺嘧啶(T)和胞嘧啶(C),4种碱基的结构如图 1所示。在DNA反向平行的双螺旋结构中,碱基间通过氢键进行互补配对,位于双螺旋的内侧;磷酸和脱氧核糖通过磷酸二酯键相连,位于双螺旋的外侧,构成了DNA的骨架。DNA严格的碱基互补配对原则以及精巧的双螺旋结构保障着遗传信息的传递和表达。

图1
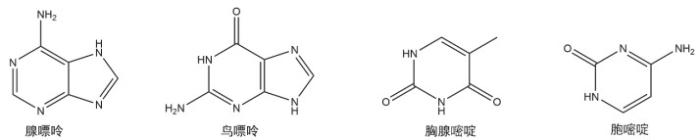
图1   DNA中正常碱基的结构


但DNA结构的完整性受到外界环境因素和机体内在因素的影响,在某些不利因素发生时,DNA结构很容易被破坏。据统计每个细胞内的DNA在24小时内会发生10000次损伤[1]。尽管机体存在着DNA损伤修复机制,降低了损伤DNA对机体生命活动的影响,但如果损伤未被修复,在机体内累积起来,便有可能导致基因突变、细胞死亡,引发癌症、个体衰老等疾病[2, 3]。肝癌即是由乙、丙型肝炎病毒(HBV, HCV)、黄曲霉毒素B1 (AFBl)、亚硝胺等因素诱导肝细胞DNA发生损伤并直接或间接影响损伤修复系统而造成的[4]。

我们生存在一个富氧的环境中,人和动物的各种生命活动都离不开氧气的参与。但与此同时,氧活泼的化学性质也常导致生物大分子发生损伤,DNA也包括在内。在众多的DNA氧化损伤产物中,8-羟基脱氧鸟苷(8-OHdG)因其特殊的化学性质,往往被认为是DNA氧化损伤的生物标志物[5]。DNA小核最近就遭遇了活性氧的攻击,它的一个鸟嘌呤碱基被氧化修饰……

1 不速之客ROS抢夺电子致DNA氧化受损

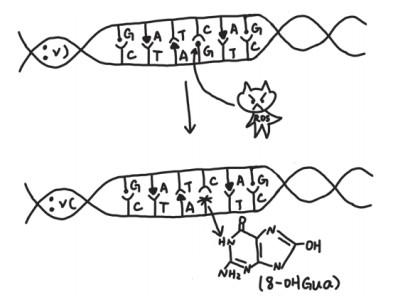
小核是一条DNA,有一天,它正在细胞内认真地完成自己的工作,但是来了一名不速之客。只见那名不速之客对小核的一个鸟嘌呤碱基的第8位碳原子进行了猛烈攻击,随后以羟基的形式结合在8位碳原子上[5],整个过程如图 2所示。小核的这个鸟嘌呤被修饰成了8-羟基鸟嘌呤,8-羟基脱氧鸟苷也由此生成。由于不速之客的攻击太过突然,当小核反应过来时只觉得自己身体的空间结构发生了改变[5],它感受到了阵阵的难受和丝丝的恐惧。

图2

图2   8-OHdG的形成


这个不速之客即是活性氧(reactive oxygen species, ROS),DNA氧化损伤就是由活性氧自由基如羟基自由基(∙OH)、超氧阴离子自由基∙O2−等对DNA分子结构的攻击引起的[1, 6]。ROS是生物体各种代谢过程的正常产物,一般情况下,机体的氧化系统与抗氧化系统之间保持着动态平衡[1, 5]。但当机体受到内部或外界环境的刺激(内源性因素如氧化剂的过度生成,外源性因素如吸烟、紫外线辐射等),这种平衡被打破,过量产生的ROS就可能直接或在细胞内经金属催化转化后攻击机体内的脂质、蛋白质、核酸等生物分子,最终导致生物分子氧化受损[1, 5, 6]。

ROS导致的DNA氧化损伤类型有很多种,包括DNA链断裂、碱基修饰、碱性位点和DNA蛋白质交联等[7]。在众多的活性氧自由基中,羟基自由基(∙OH)是造成生物分子氧化受损最活泼的自由基,其在细胞有氧代谢过程中通过Fenton反应生成[8],其化学反应式为Fe2++ H2O2 → Fe3+ + ∙OH + OH−。由于鸟嘌呤的氧化电位最低,分子轨道能级较高,很容易受到∙OH的攻击而形成加合物[5]。小核所遭遇的这次损伤即是∙OH攻击鸟嘌呤的第8位碳原子生成C8-OH加合物自由基,而后自由基的一个电子被氧化生成的。除了生成8-羟基鸟嘌呤,C8-OH加合物自由基的电子也可能被还原生成甲酰氨基嘧啶[8, 9],其反应机制如图 3所示。

图3
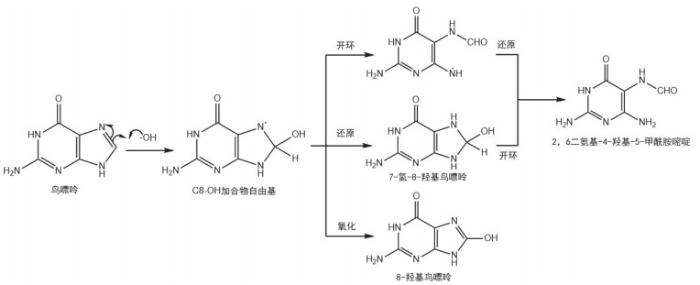
图3   鸟嘌呤与∙OH的反应机理[8, 9]


2 酶医生各司其职全力抢救

DNA Damage Hospital的酶医生感受到了事故的发生,连忙对小核进行治疗。它们各司其职,有条不紊。首先上手术台的医生是DNA糖基化酶(OGG1),它准确地识别了被修饰的鸟嘌呤在小核身体中的位置。随后,它将N-糖苷键水解,使得损伤碱基8-羟基鸟嘌呤从小核身体中移除,在损伤处产生无碱基位点(AP位点)。就此,DNA糖基化酶的工作完成,医生AP核酸内切酶(APE1)开始工作。它负责剪切AP位点处的磷酸二酯键,为碱基的进一步修复做准备。之后,医生DNA聚合酶(DNA pol)和DNA连接酶(DNA ligase)合作在DNA链空缺处补上正常的鸟嘌呤[6, 10, 11]。手术顺利完成,小核的损伤被修复,手术过程如图 4所示。

图4
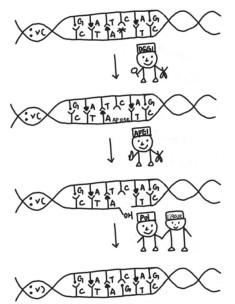
图4   碱基切除修复过程


生物体存在着DNA损伤修复机制,可以对DNA的各类损伤进行修复。修复过程中的酶就好比是医生,不同的酶可以对DNA不同的损伤进行诊断和治疗。在DNA损伤应答中,酶医生主要通过碱基切除修复(BER)途径对碱基修饰损伤进行诊断和治疗,即小核被医治的过程。

该途径所涉及酶的种类是多样且复杂的。DNA糖基化酶就有很多种类型,在不同的生物当中也有所差异,原核生物中针对8-OHdG的糖基化酶主要为甲酰胺嘧啶DNA糖基化酶(Fpg,也称MutM),真核生物中主要为8-羟基鸟嘌呤-DNA糖基酶(OGG1)。一些糖基化酶还具有AP裂解酶活性,可以使DNA链断裂。DNA聚合酶和DNA连接酶的不同种类会导致BER途径所经历步骤的多少有所差异[10, 12, 13]。

3 分析方法各显神通检测8-羟基脱氧鸟苷

DNA小核在酶医生的救治下恢复了健康。医生对小核说,现实状况下,由于我们生存环境的复杂性以及酶医生工作效率的有限性,并不是所有的DNA损伤都能够得到修复。你所受到的损伤是很典型的,8-羟基鸟嘌呤无法特异性与胞嘧啶配对,而同时具有与A、T、C配对的能力[5]。假如我们没有及时发现你的病情并开展有效的治疗,8-OHdG在DNA复制过程中与其他碱基错配,便可能导致突变的发生。我们DNA Damage Hospital的医生曾经遇到过8-羟基鸟嘌呤与腺嘌呤A错配而导致G : C → T : A突变的病例,但这种突变被治愈的过程很漫长,甚至无法被治愈[5]。8-OHdG的不断积累还会促进DNA氧化损伤的发生,使得某些基因发生突变,从而导致我们赖以生存的细胞家园衰老死亡,甚至引发我们身体主人患上癌症等严重的疾病[1]。小核在听完酶医生的话后,感觉自己十分幸运,但也开始担忧起自己身体的未来……

DNA损伤的产生和积累可能会引发各种疾病的产生,准确测量DNA损伤的含量对于发现潜在的疾病、早期临床诊断和治疗监测至关重要。8-OHdG在生物体内具有较为稳定的化学性质,不会被进一步代谢,可以作为DNA氧化损伤的生物标志物,对其进行定量检测可以反映DNA氧化损伤程度以及细胞对DNA氧化损伤的修复能力[1, 5, 6]。

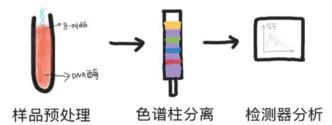
8-OHdG的定量分析方法有很多种,其中利用色谱和检测器串联的检测方法被报道的较多,如高效液相色谱-电化学法(HPLC-ECD)、气质联用分析法(GC-MS)、超高效液相色谱-串联质谱法等。其检测原理如图 5所示,将待测样品用DNA酶水解或其他方式预处理后,利用色谱将8-OHdG与其他干扰物质分离,再利用检测器对8-OHdG进行定量检测[14, 15]。

图5

图5   色谱与检测器串联定量分析原理


此外,应用较多的还有酶联免疫吸附法(ELISA法)、32P后标记法和PY共振光散射法等。ELISA是利用抗体与酶复合物结合,通过显色来检测抗体或抗原的方法。其基本原理如图 6所示,8-OHdG固相抗原与样品中的8-OHdG竞争一定量的8-OHdG特异性单克隆抗体,再用特异性酶联抗体标记与固相抗原结合的特异性单克隆抗体,加入底物显色后,测定光密度值,通过计算与固相抗原结合的特异性单克隆抗体含量来间接计算样品中8-OHdG的含量[16]。32P后标记法将DNA链降解为3’单核苷酸后去磷酸化,被羟基加合的单磷酸核苷可以抵抗去磷酸化作用,使得[γ-32P]ATP的磷酸基团可以在酶的作用下转移到加合物核苷酸上,对[γ-32P]ATP进行检测可以间接获得加和物的含量[14, 17]。PY共振光散射法利用吡啰红Y阳离子染料与8-OHdG阴离子形成离子缔合物,导致体系的共振光散射增强实现定量检测[18]。

图6
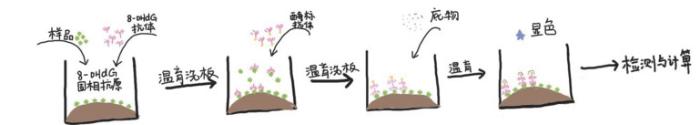
图6   ELISA法检测原理[19]


不同的检测方法各有特点,在实际应用中应根据所需选择合适的检测方案,表 1总结了常见8-OHdG检测方法的相关参数。

表1   常见8-OHdG检测方法的相关参数

分析方法检出限线性范围线性相关系数平均加标回收率参考文献
HPLC-ECD13 pg∙mL−10.01–15 ng∙mL−10.989–0.99996.52%20
GC-MS0.14 ng∙mL−11.4–2800 ng∙mL−10.998999.37%21
ELISA0.5 ng∙mL−10.5–60 ng∙mL−10.9–22
PY共振光散射15.2 ng∙mL−150–226.4 ng∙mL−10.99992.2%18
32P后标记法1个8-OHdG/106核苷–––17

数据来源于参考文献,除32P后标记法的检测样品为小鼠组织DNA外,其他四种方法的检测样品均为人尿液;
在进行加标回收实验时,表中5种方法的加标浓度不同,每种方法所列出的回收率值是几组实验的平均值

新窗口打开| 下载CSV


4 结语

小核的这次遭遇给它留下了深刻的印象,它忘不了活性氧加合在鸟嘌呤上时给它带来的痛苦,也忘不了机智的酶医生对它精心的照顾和治疗,但也担心自己可能随时受到内外界的攻击。它在心里默默许愿:希望身体主人能够爱护好身体,比如按时休息、不抽烟、减少接触紫外线辐射或电离辐射等,也希望有更准确、更快速、更便捷的DNA损伤检测方法被研发出来。

参考文献

冉茂良; 高环; 尹杰; 陈斌. 动物营养学报, 2013, 25 (10), 2238.

DOI:10.3969/j.issn.1006-267x.2013.10.007      [本文引用: 6]

Tubbs A. ; Nussenzweig A. Cell 2017, 168 (4), 644.

DOI:10.1016/j.cell.2017.01.002      [本文引用: 1]

Lodato M. A. ; Rodin R. E. ; Bohrson C. L. ; Coulter M. E. ; Barton A. R. ; Kwon M. ; Sherman M. A. ; Vitzthum C. M. ; Luquette L. J. ; Yandava C. N. ; et al Science 2018, 359 (6375), 555.

DOI:10.1126/science.aao4426      [本文引用: 1]

朱德强; 黄志勇. 世界华人消化杂志, 2007, 15 (16), 644.

URL     [本文引用: 1]

杨柳春; 王克义. 浙江医学, 2021, 43 (23), 2608.

URL     [本文引用: 9]

Wu L. L. ; Chiou C. C. ; Chang P. Y. ; Wu J. T. Clin. Chim. Acta 2004, 339 (1-2), 1.

DOI:10.1016/j.cccn.2003.09.010      [本文引用: 4]

蔡凌霜; 曾昭睿; 吴采樱. 分析测试学报, 2001, 20 (5), 88.

DOI:10.3969/j.issn.1004-4957.2001.05.029      [本文引用: 1]

张德莉; 朱圣姬; 罗光富; 黄应平; 袁丁; 刘立明. 三峡大学学报(自然科学版), 2004, 26 (6), 563.

URL     [本文引用: 3]

Dizdaroglu M. ; Jaruga P. ; Birincioglu M. ; Rodriguez H. Free Radic. Biol. Med. 2002, 32 (11), 1102.

DOI:10.1016/S0891-5849(02)00826-2      [本文引用: 2]

Boiteux S. ; Radicella J. P. Biochimie 1999, 81 (1-2), 59.

DOI:10.1016/S0300-9084(99)80039-X      [本文引用: 2]

Dizdaroglu M. Cancer Lett. 2012, 327 (1-2), 26.

DOI:10.1016/j.canlet.2012.01.016      [本文引用: 1]

Poetsch A. R. Comput. Struct. Biotechnol. J. 2020, 18, 207.

DOI:10.1016/j.csbj.2019.12.013      [本文引用: 1]

许希雪; 袁建辉; 柯跃斌; 唐焕文. 中南医学科学杂志, 2012, 40 (2), 193.

DOI:10.3969/j.issn.2095-1116.2012.02.022      [本文引用: 1]

汪莉君; 邵华. 中国卫生检验杂志, 2007, 17 (10), 1915.

DOI:10.3969/j.issn.1004-8685.2007.10.089      [本文引用: 2]

刘胜林. 医学综述, 2006, 12 (17), 1073.

DOI:10.3969/j.issn.1006-2084.2006.17.024      [本文引用: 1]

郑全美; 郭绍春; 何景宏; 李冰; 刘珊. 中国卫生检验杂志, 2002, 12 (2), 145.

URL     [本文引用: 1]

潘洪志; 常东; 那立欣; 王军; 李蓉. 中国卫生检验杂志, 2004, 14 (1), 19.

URL     [本文引用: 1]

米贤文; 王永生; 薛金花; 欧阳运富. 中国卫生检验杂志, 2005, 15 (10), 1161.

URL     [本文引用: 1]

酶联免疫/ELISA分类. [2022-04-01]. http://www.alaibao.cn/News/NewsDetails-1359.html

[本文引用: 1]

彭涛; 严律南; 刘志明; 葛西宏; 彭民浩; 黎乐群; 玉江和义; 秦雪; 韦忠亮; 梁任祥; 等. 中国普外基础与临床杂志, 2003, 10 (3), 281.

URL    

梅素容; 王鹏; 吴采樱; 周宜开. 华中科技大学学报(自然科学版), 2006, 34 (5), 118.

URL    

Chiou C. C. ; Chang P. Y. ; Chan E. C. ; Wu T. L. ; Tsao K. C. ; Wu J. T. Clin. Chim. Acta 2003, 334 (1-2), 87.

/

〈 〉